Currículum
Tema 06. Micosis cutáneas
TEMA 06. MICOSIS CUTÁNEAS
0/0
1. INTRODUCCIÓN
0/2

2. DERMATOFITOSIS O TIÑAS
0/8
3. CANDIDIASIS
0/10
4. PITIRIASIS VERSICOLOR
0/7
5. BIBLIOGRAFIA
0/1
Imágenes tema

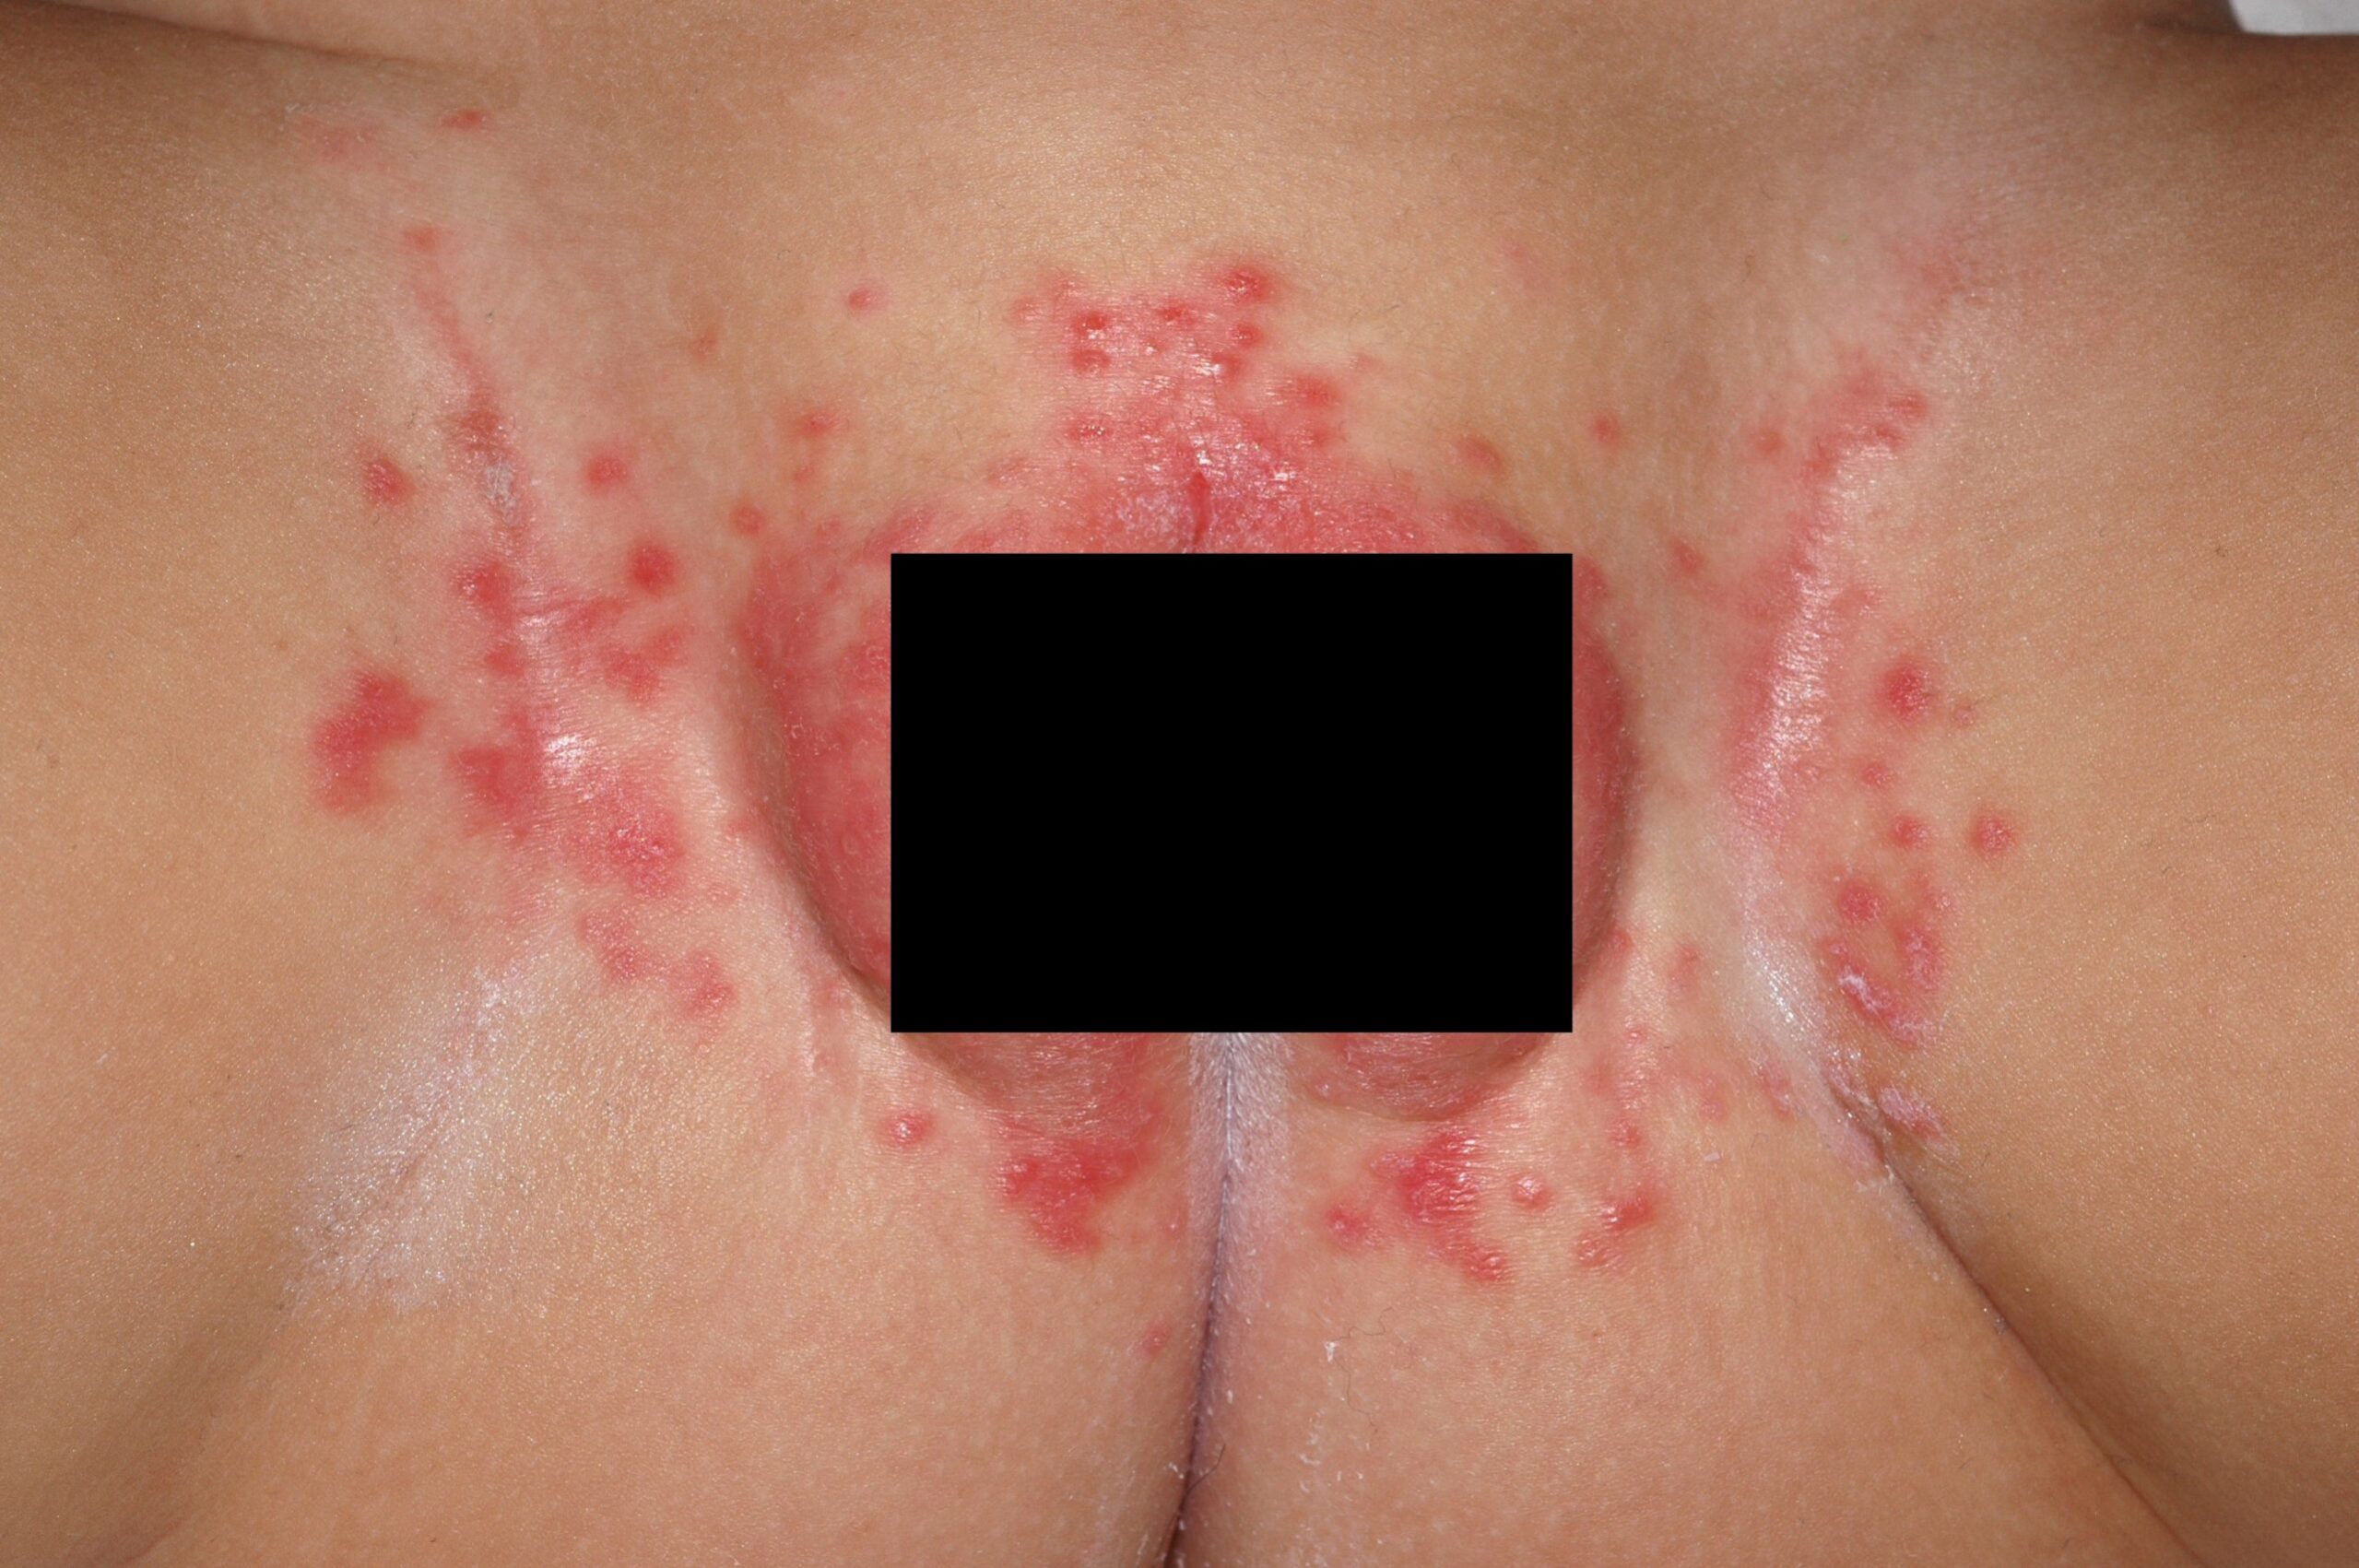
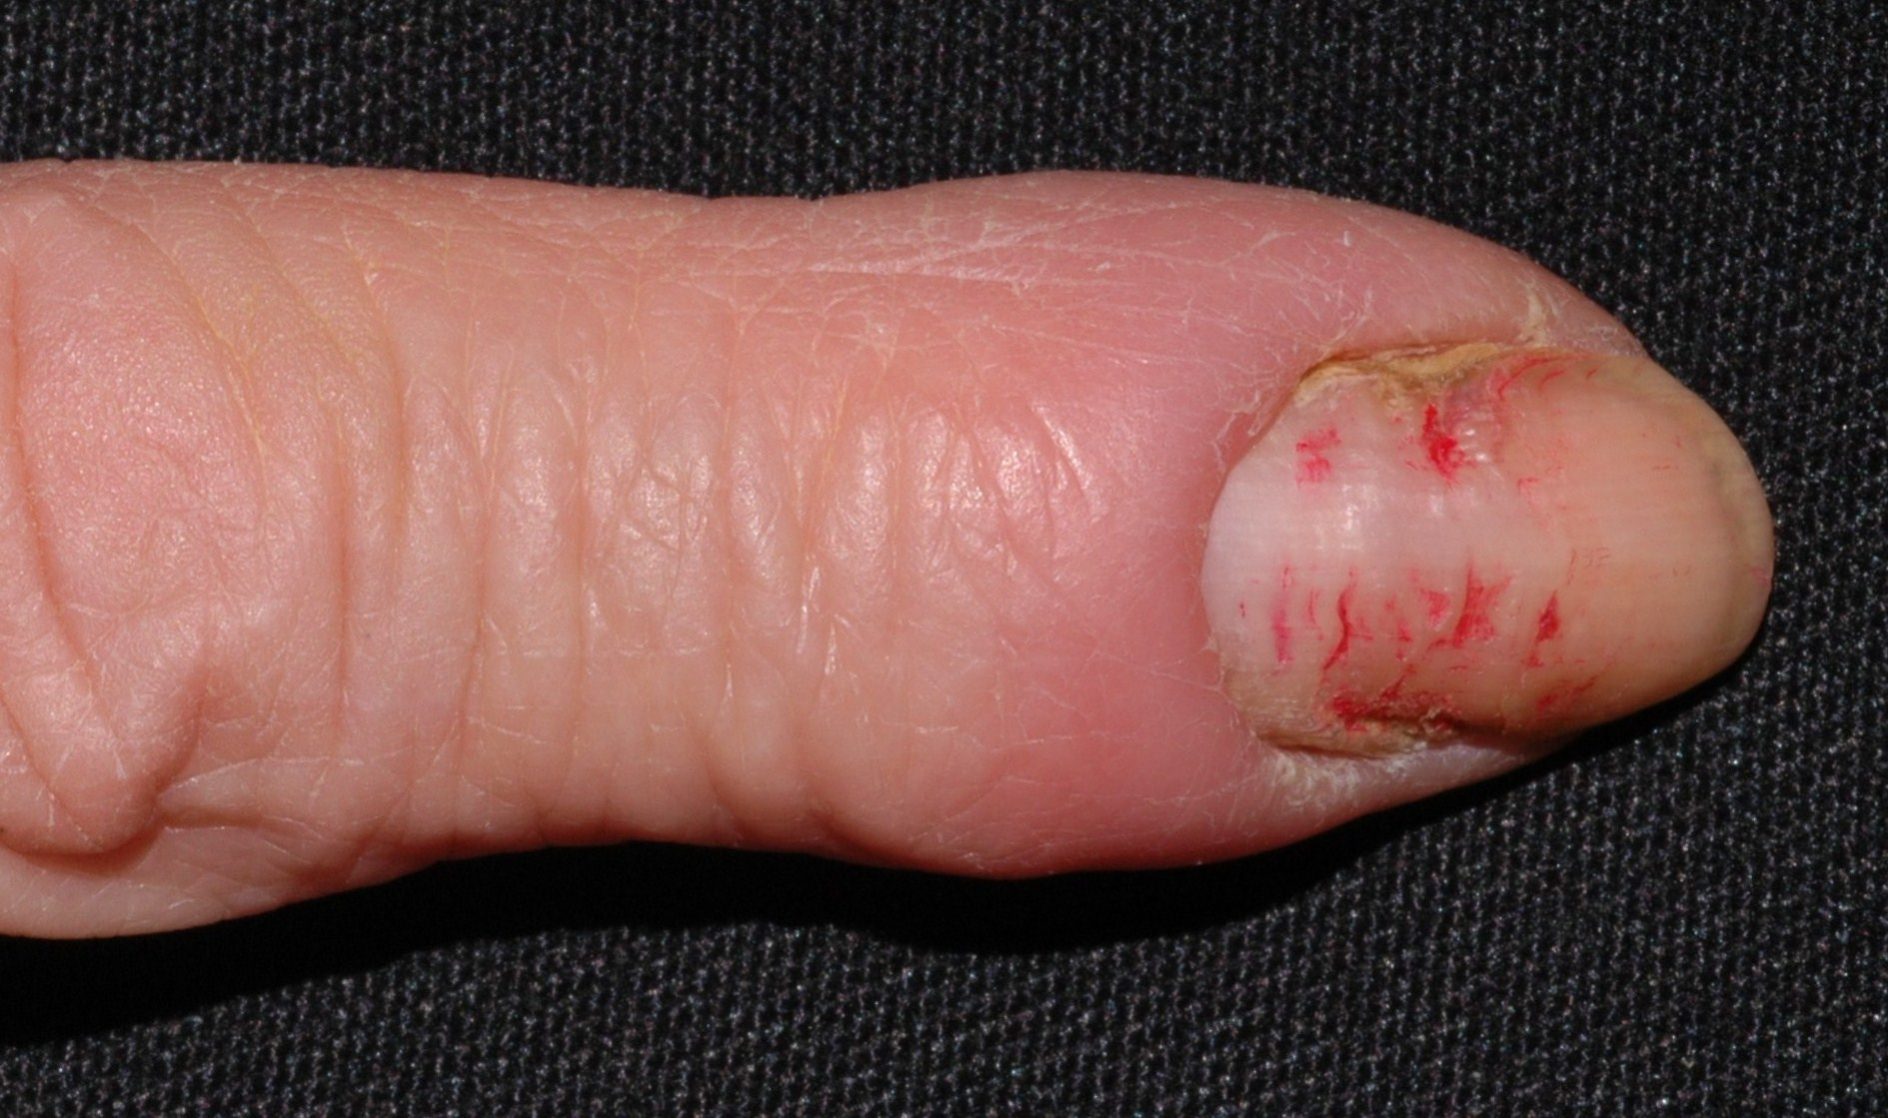
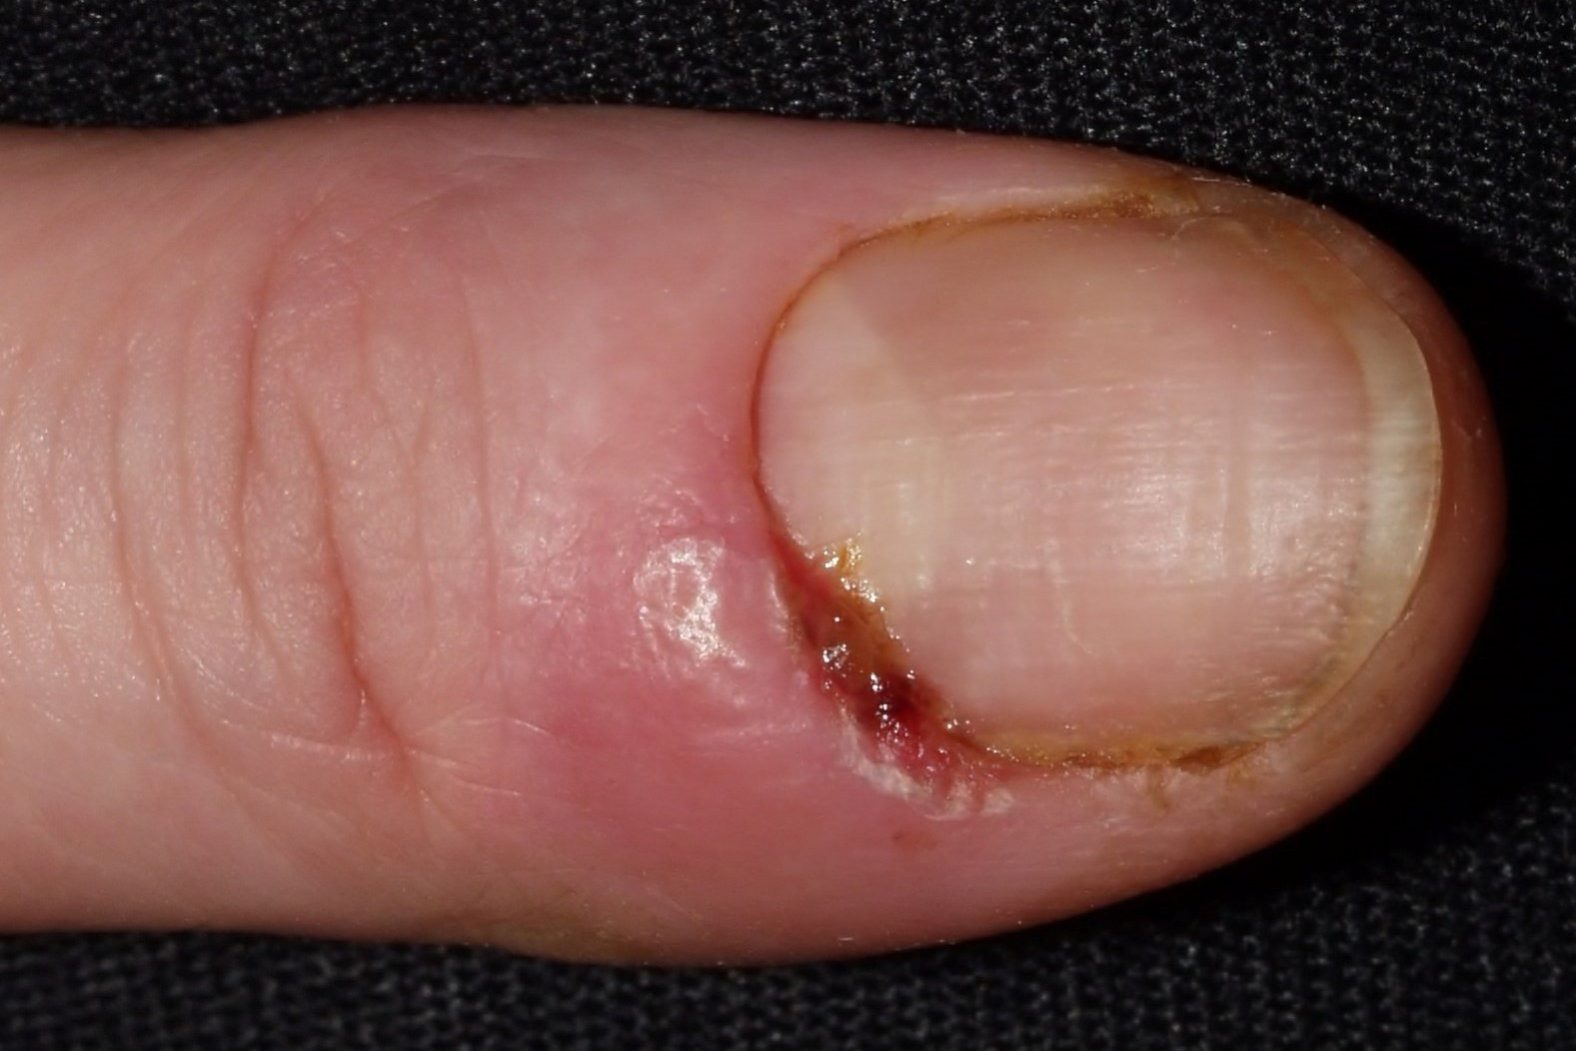
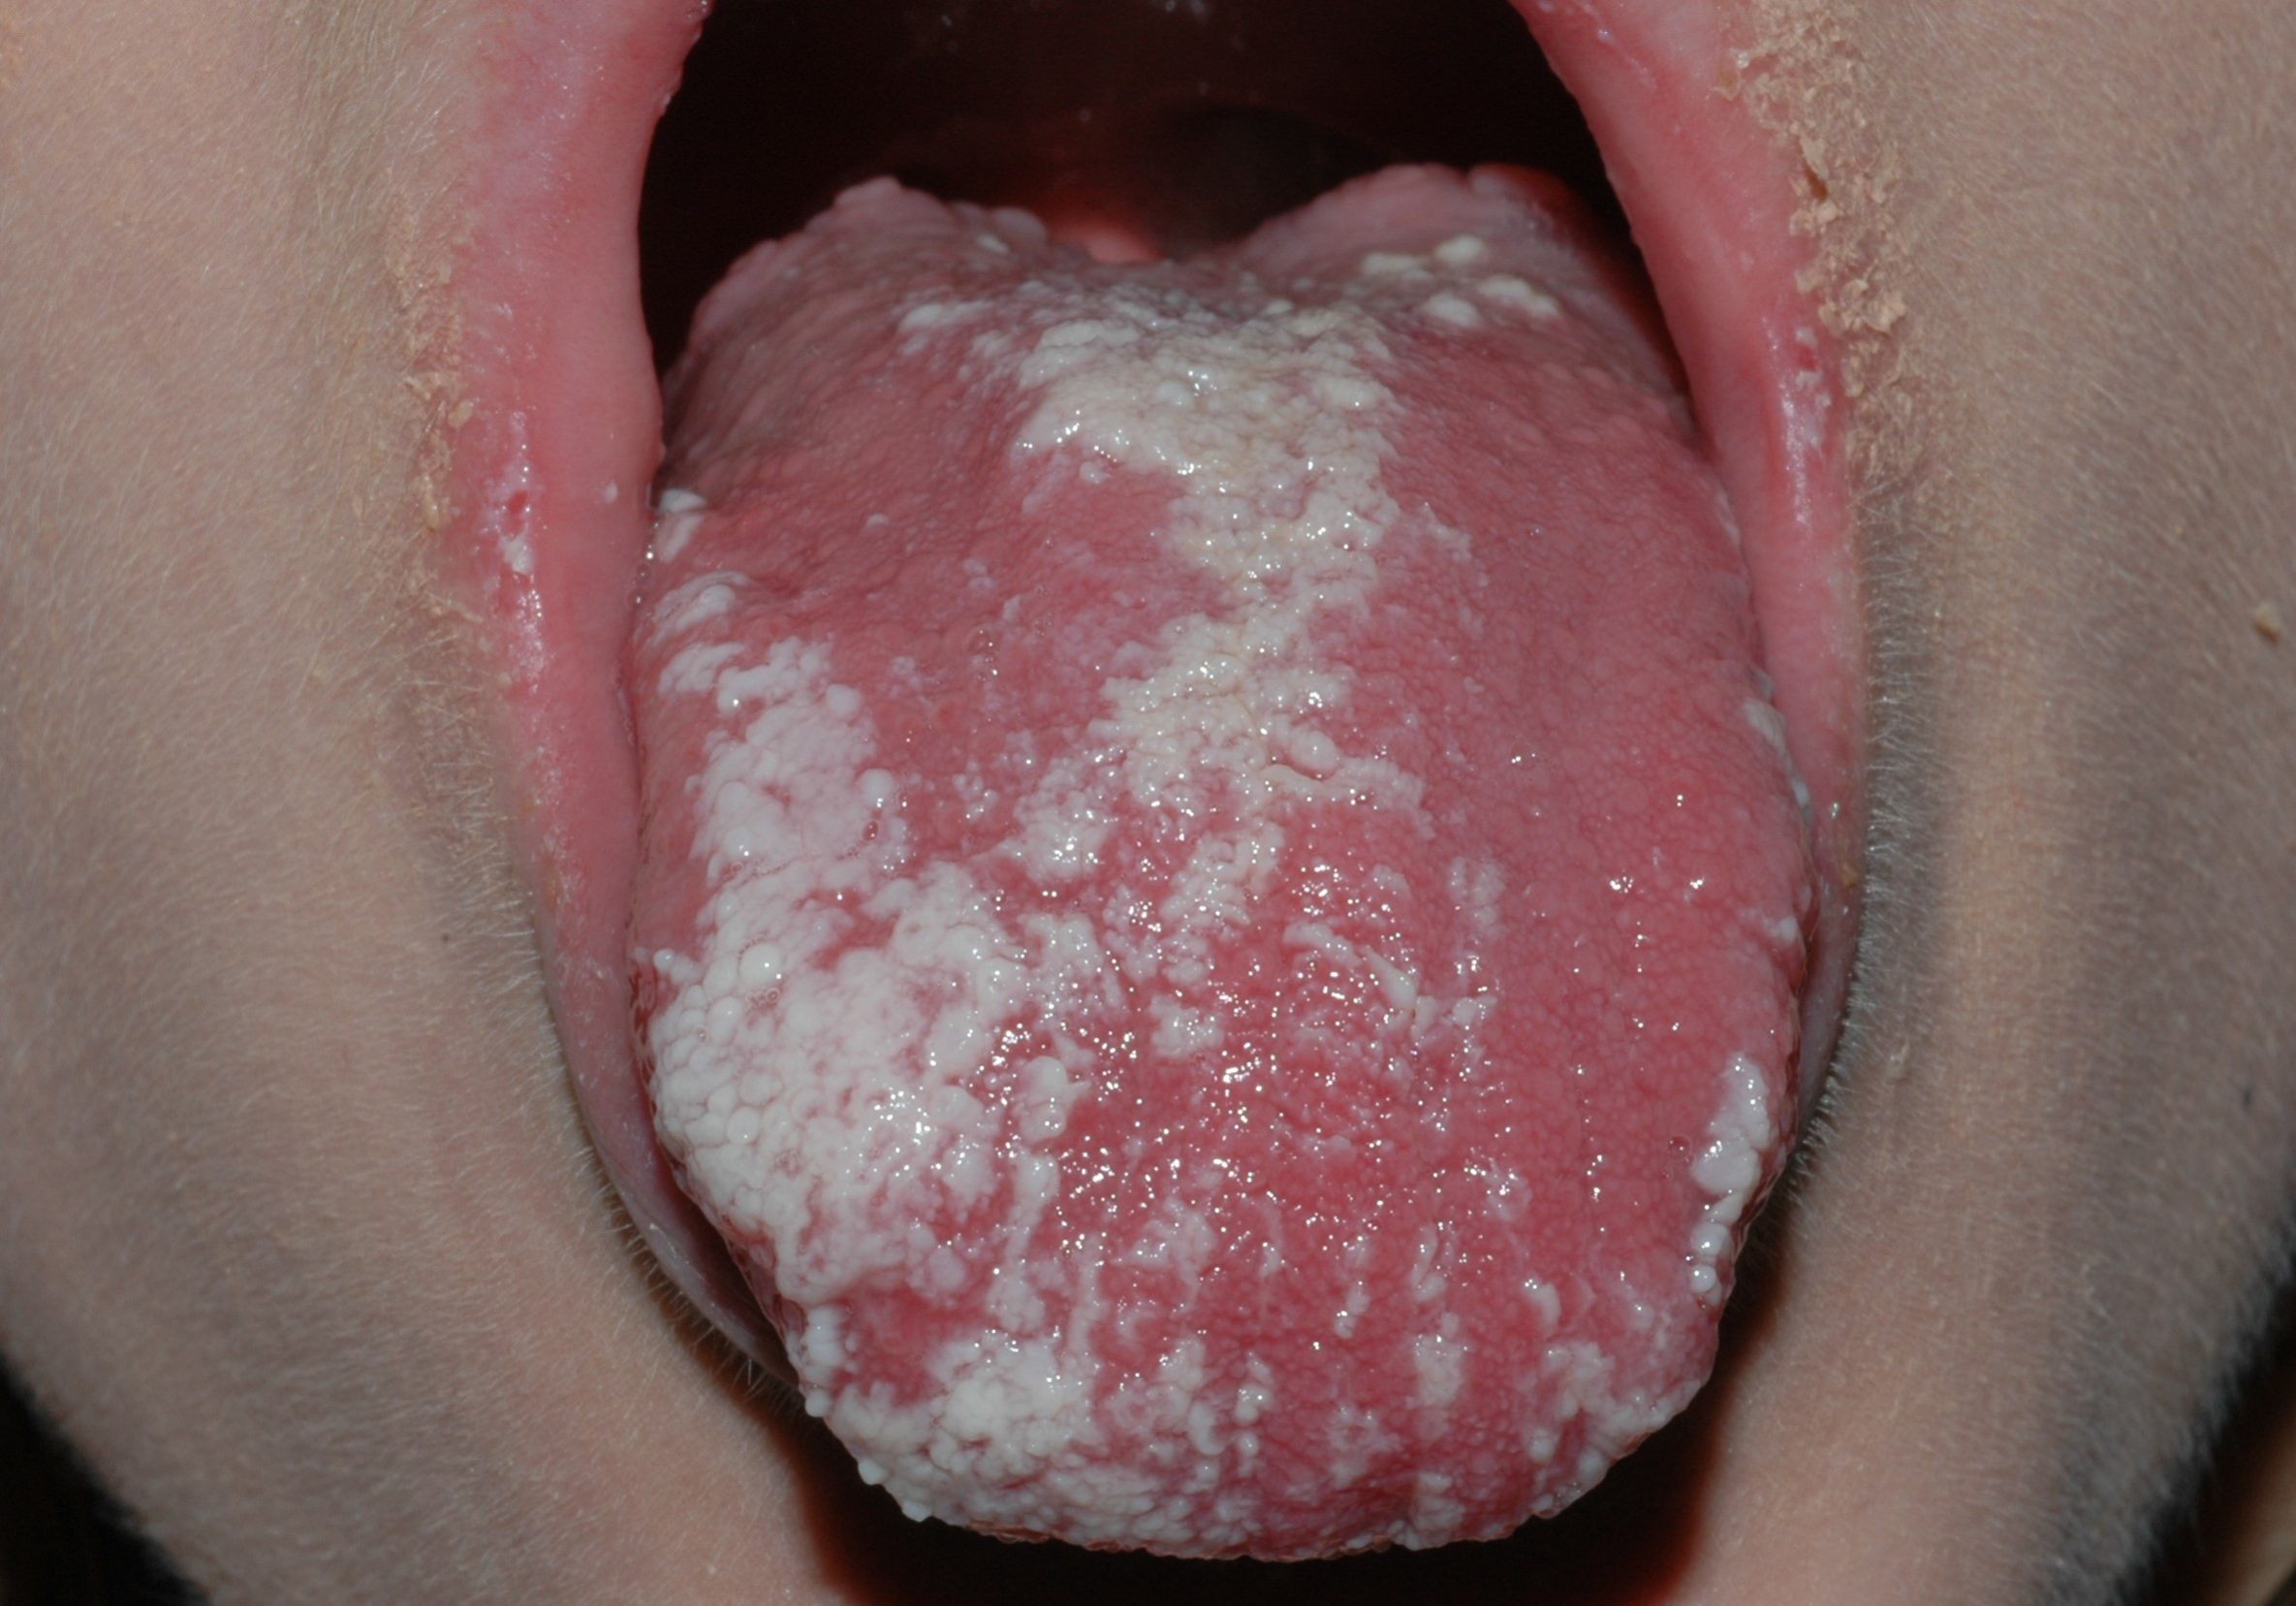
3.4. Patogenicidad y factores de virulencia
Los factores de virulencia son las habilidades por las cuales agentes patógenos para ser humano llegan a producir invasión, infección, modulación de la respuesta inmune a su favor y dificultan el tratamiento contra ellos. Esto se suma a algunas características del anfitrión, de las cuales toman ventaja, como la humedad en ciertas áreas del cuerpo, la inmunosupresión y la presencia de artefactos médicos invasivos.
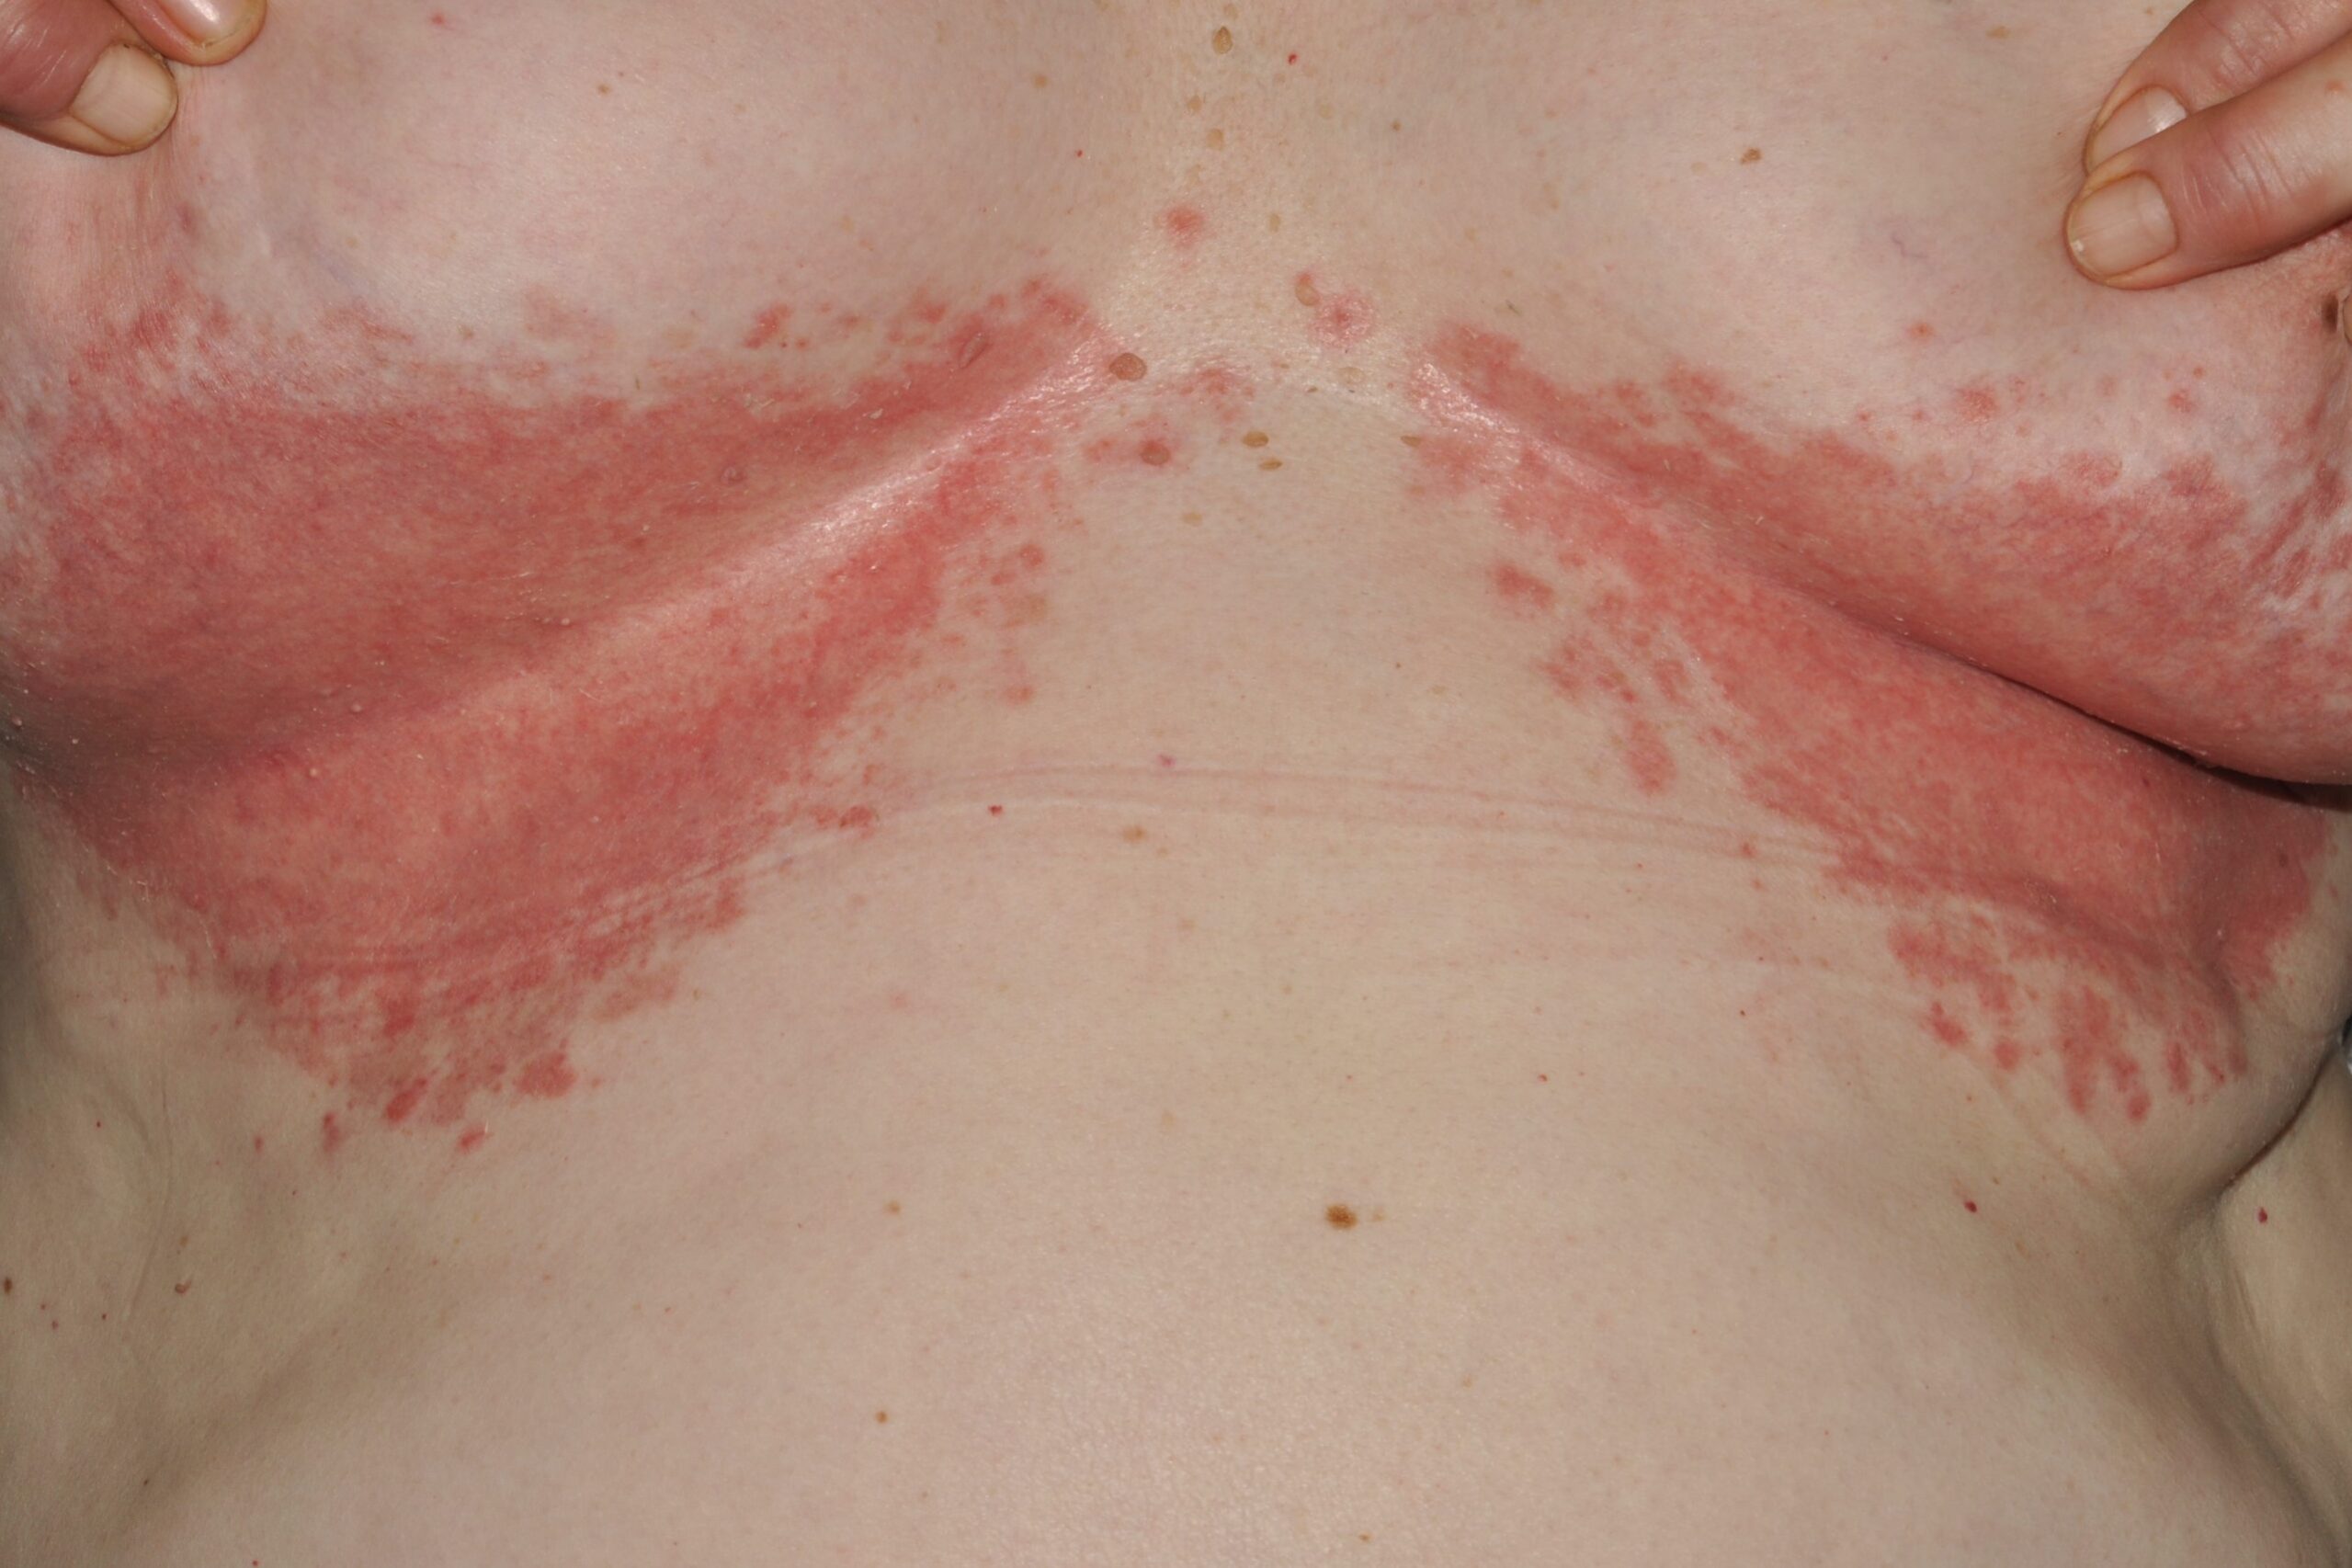
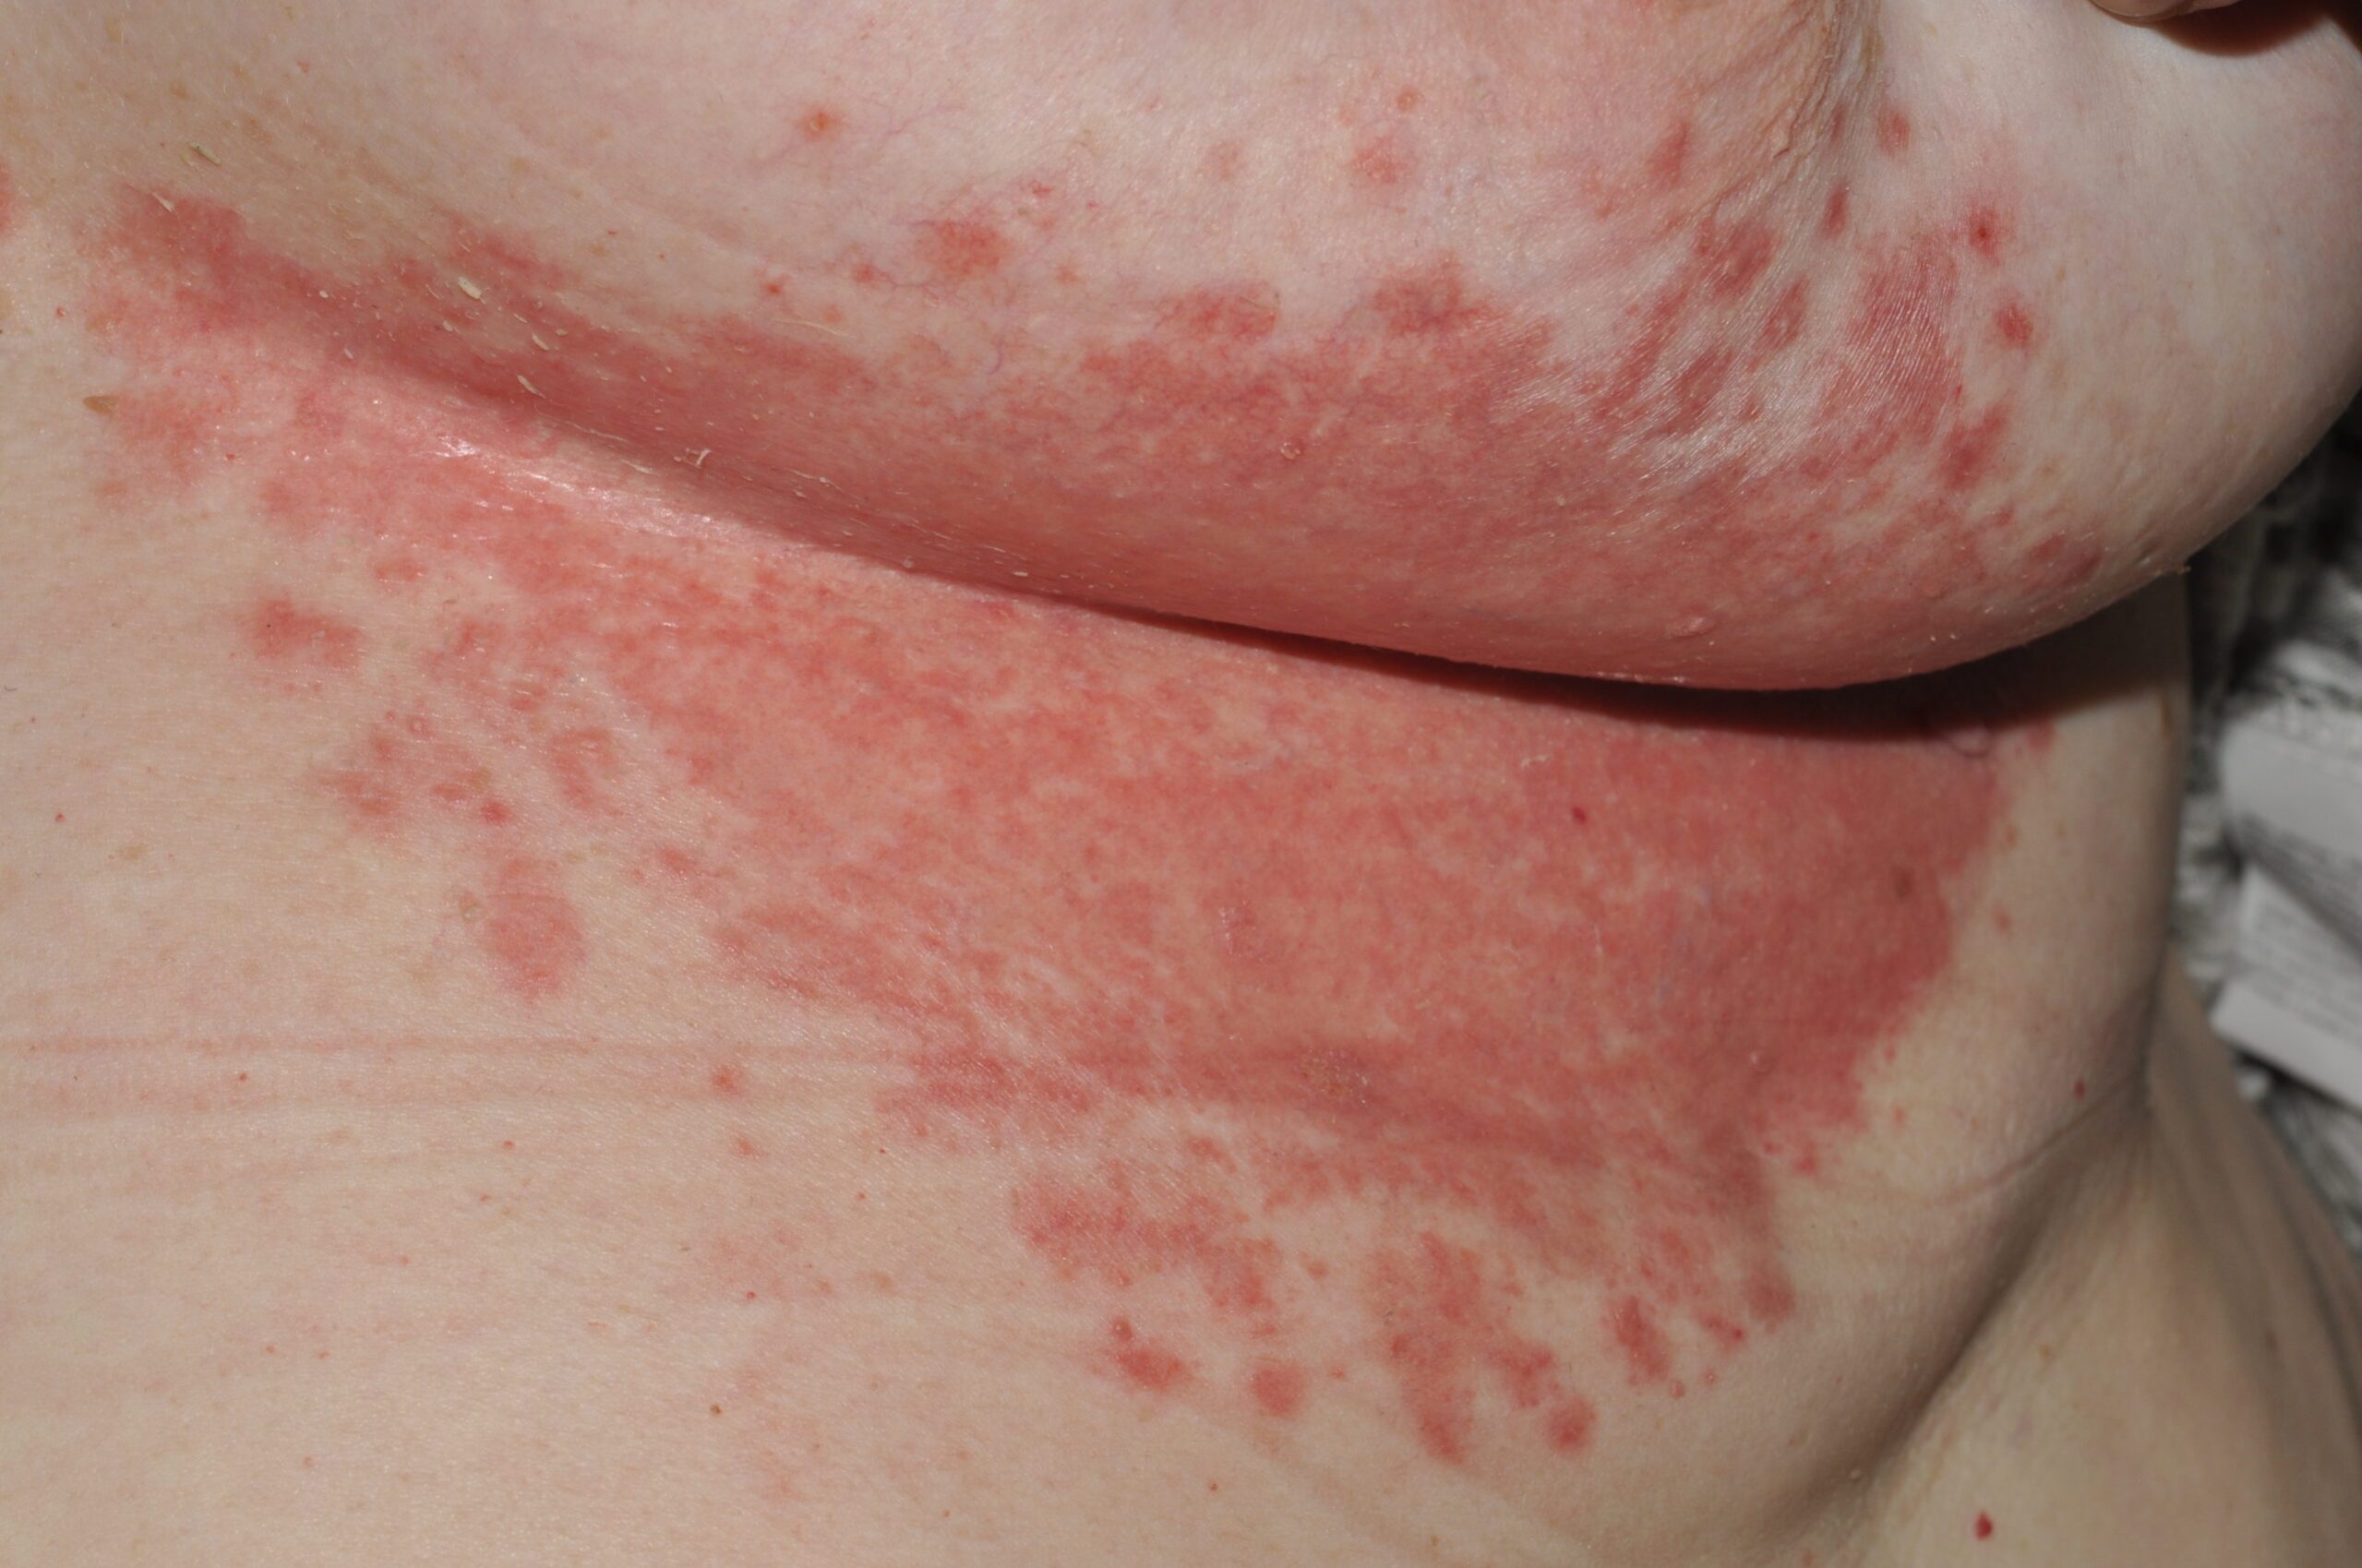
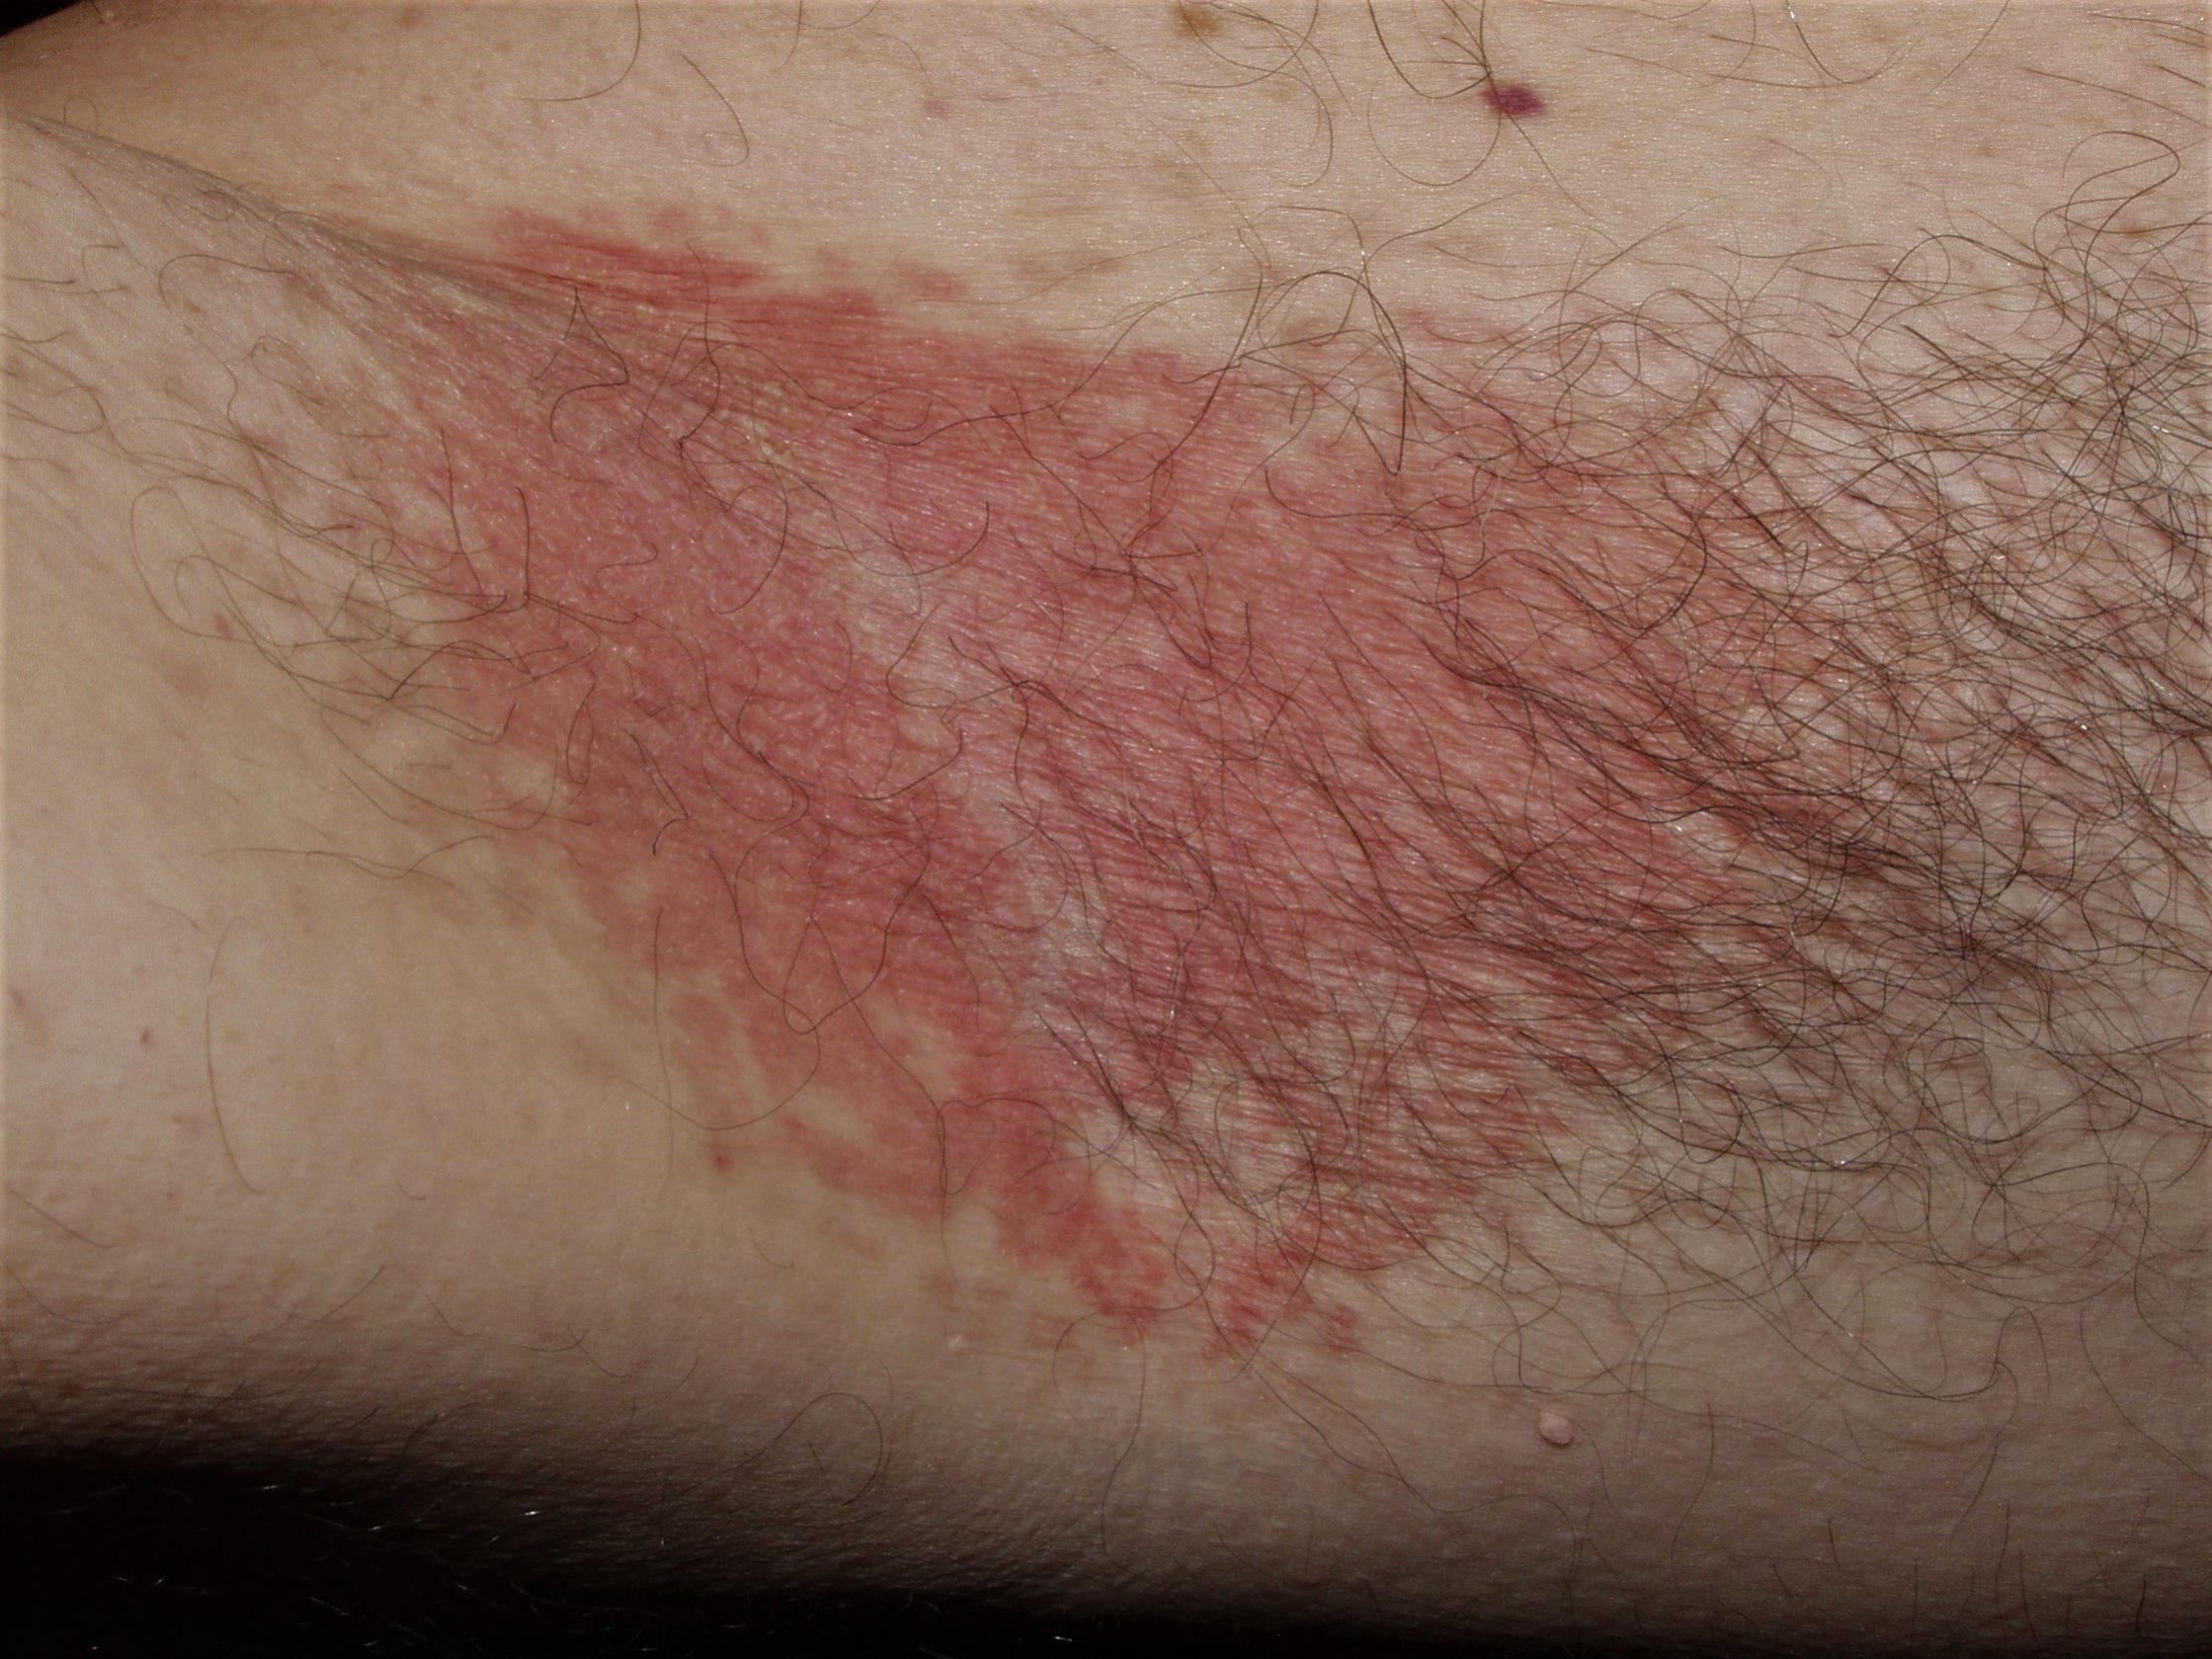
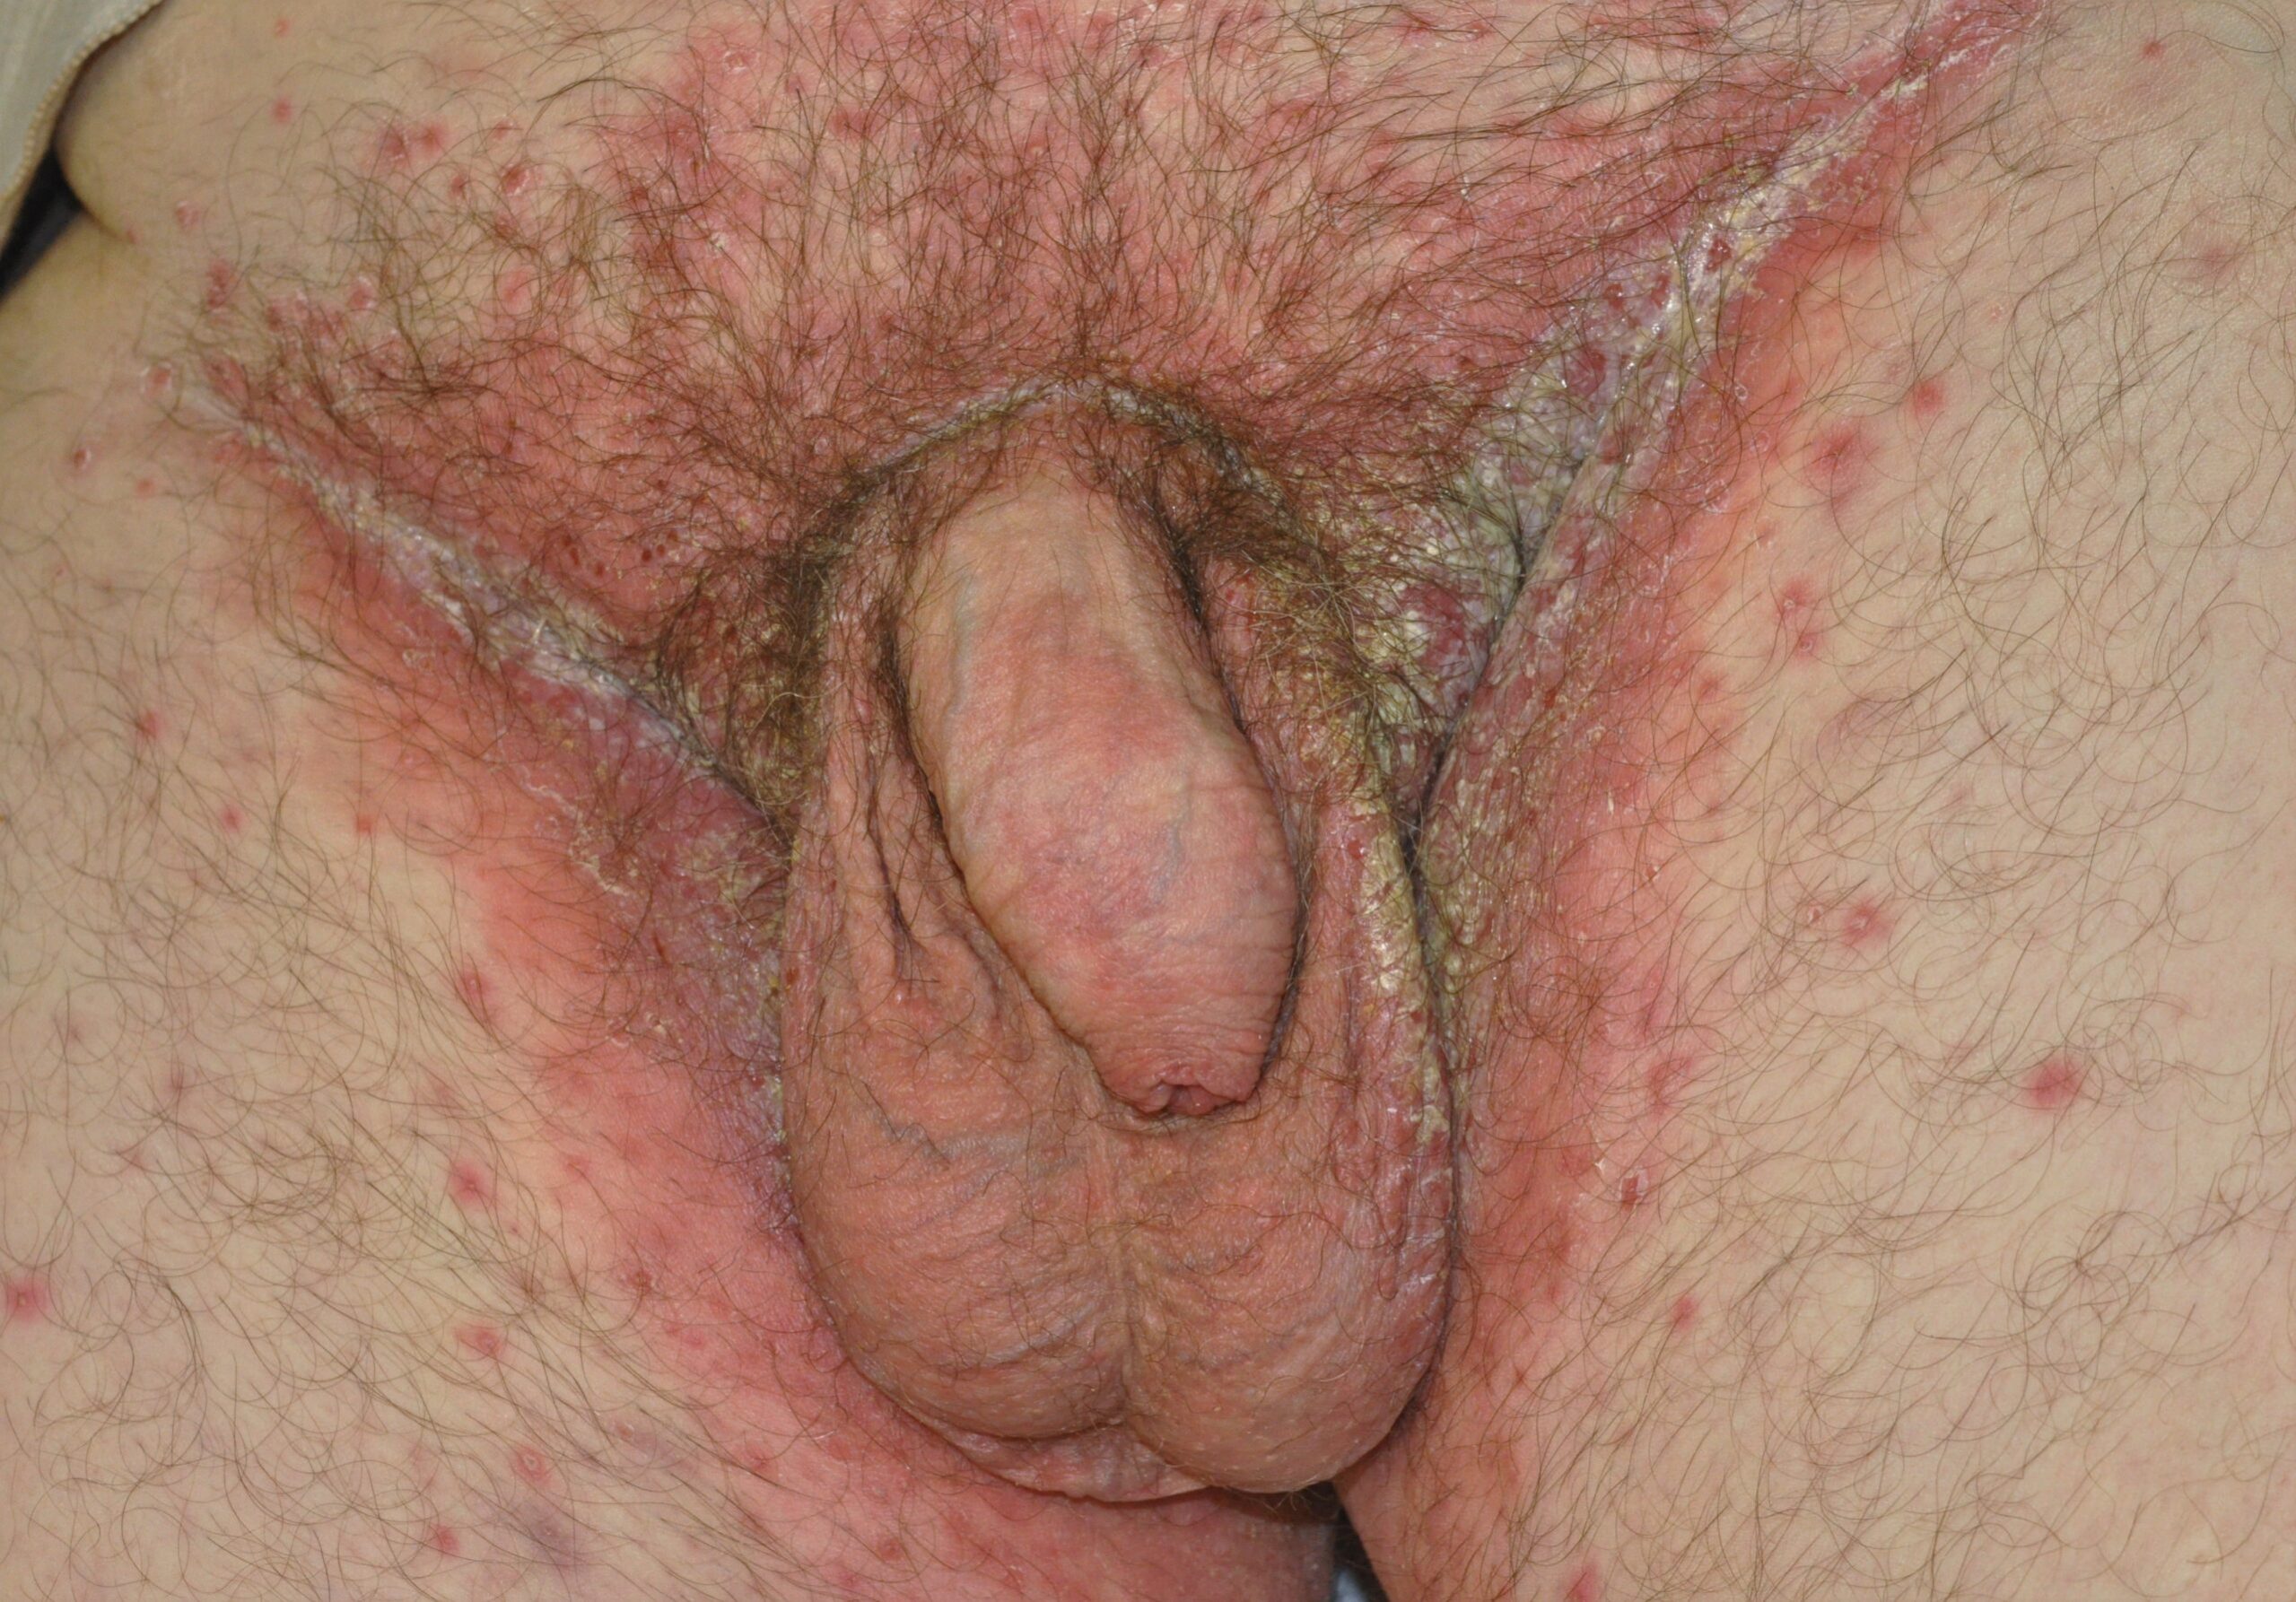
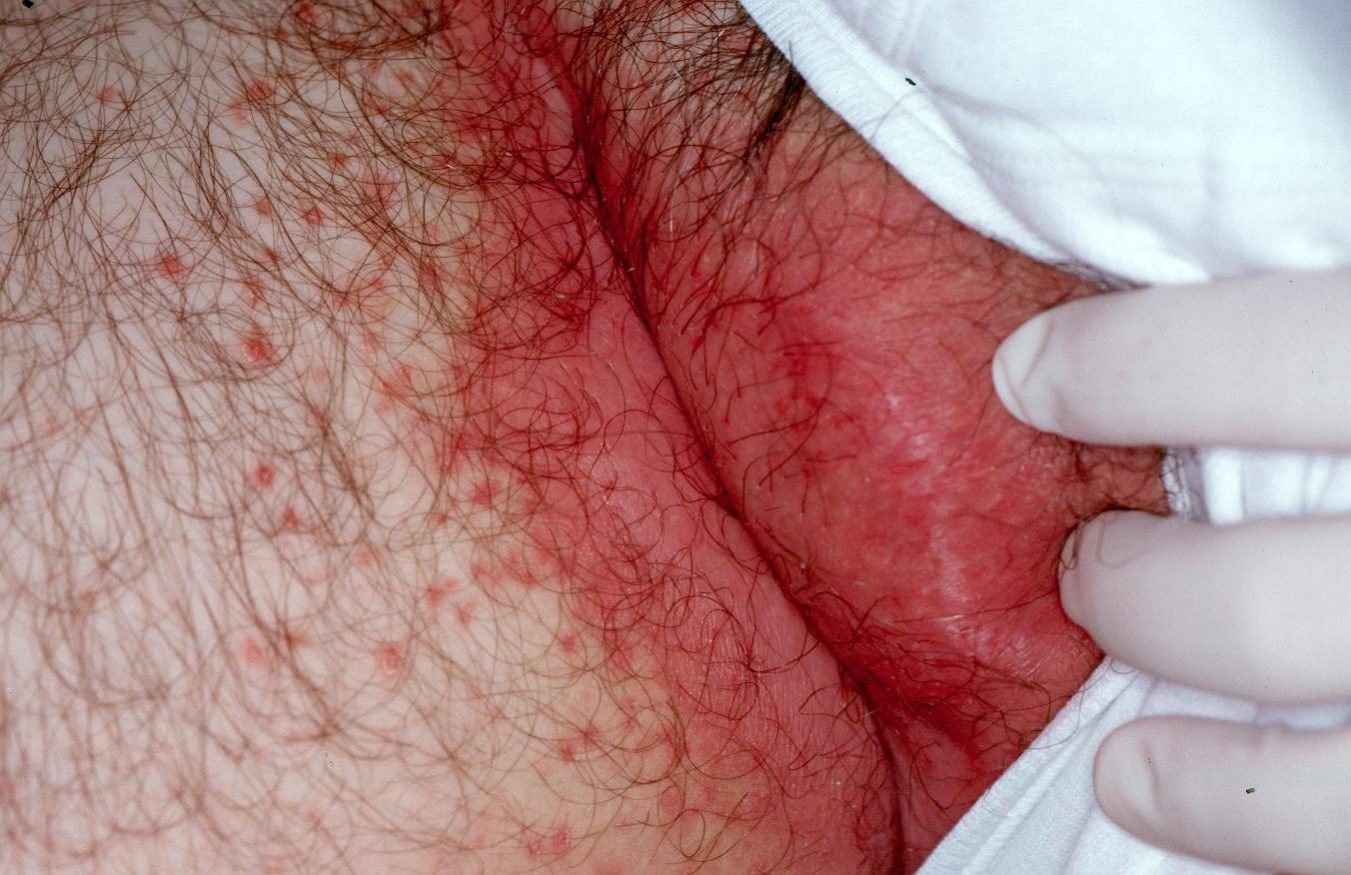
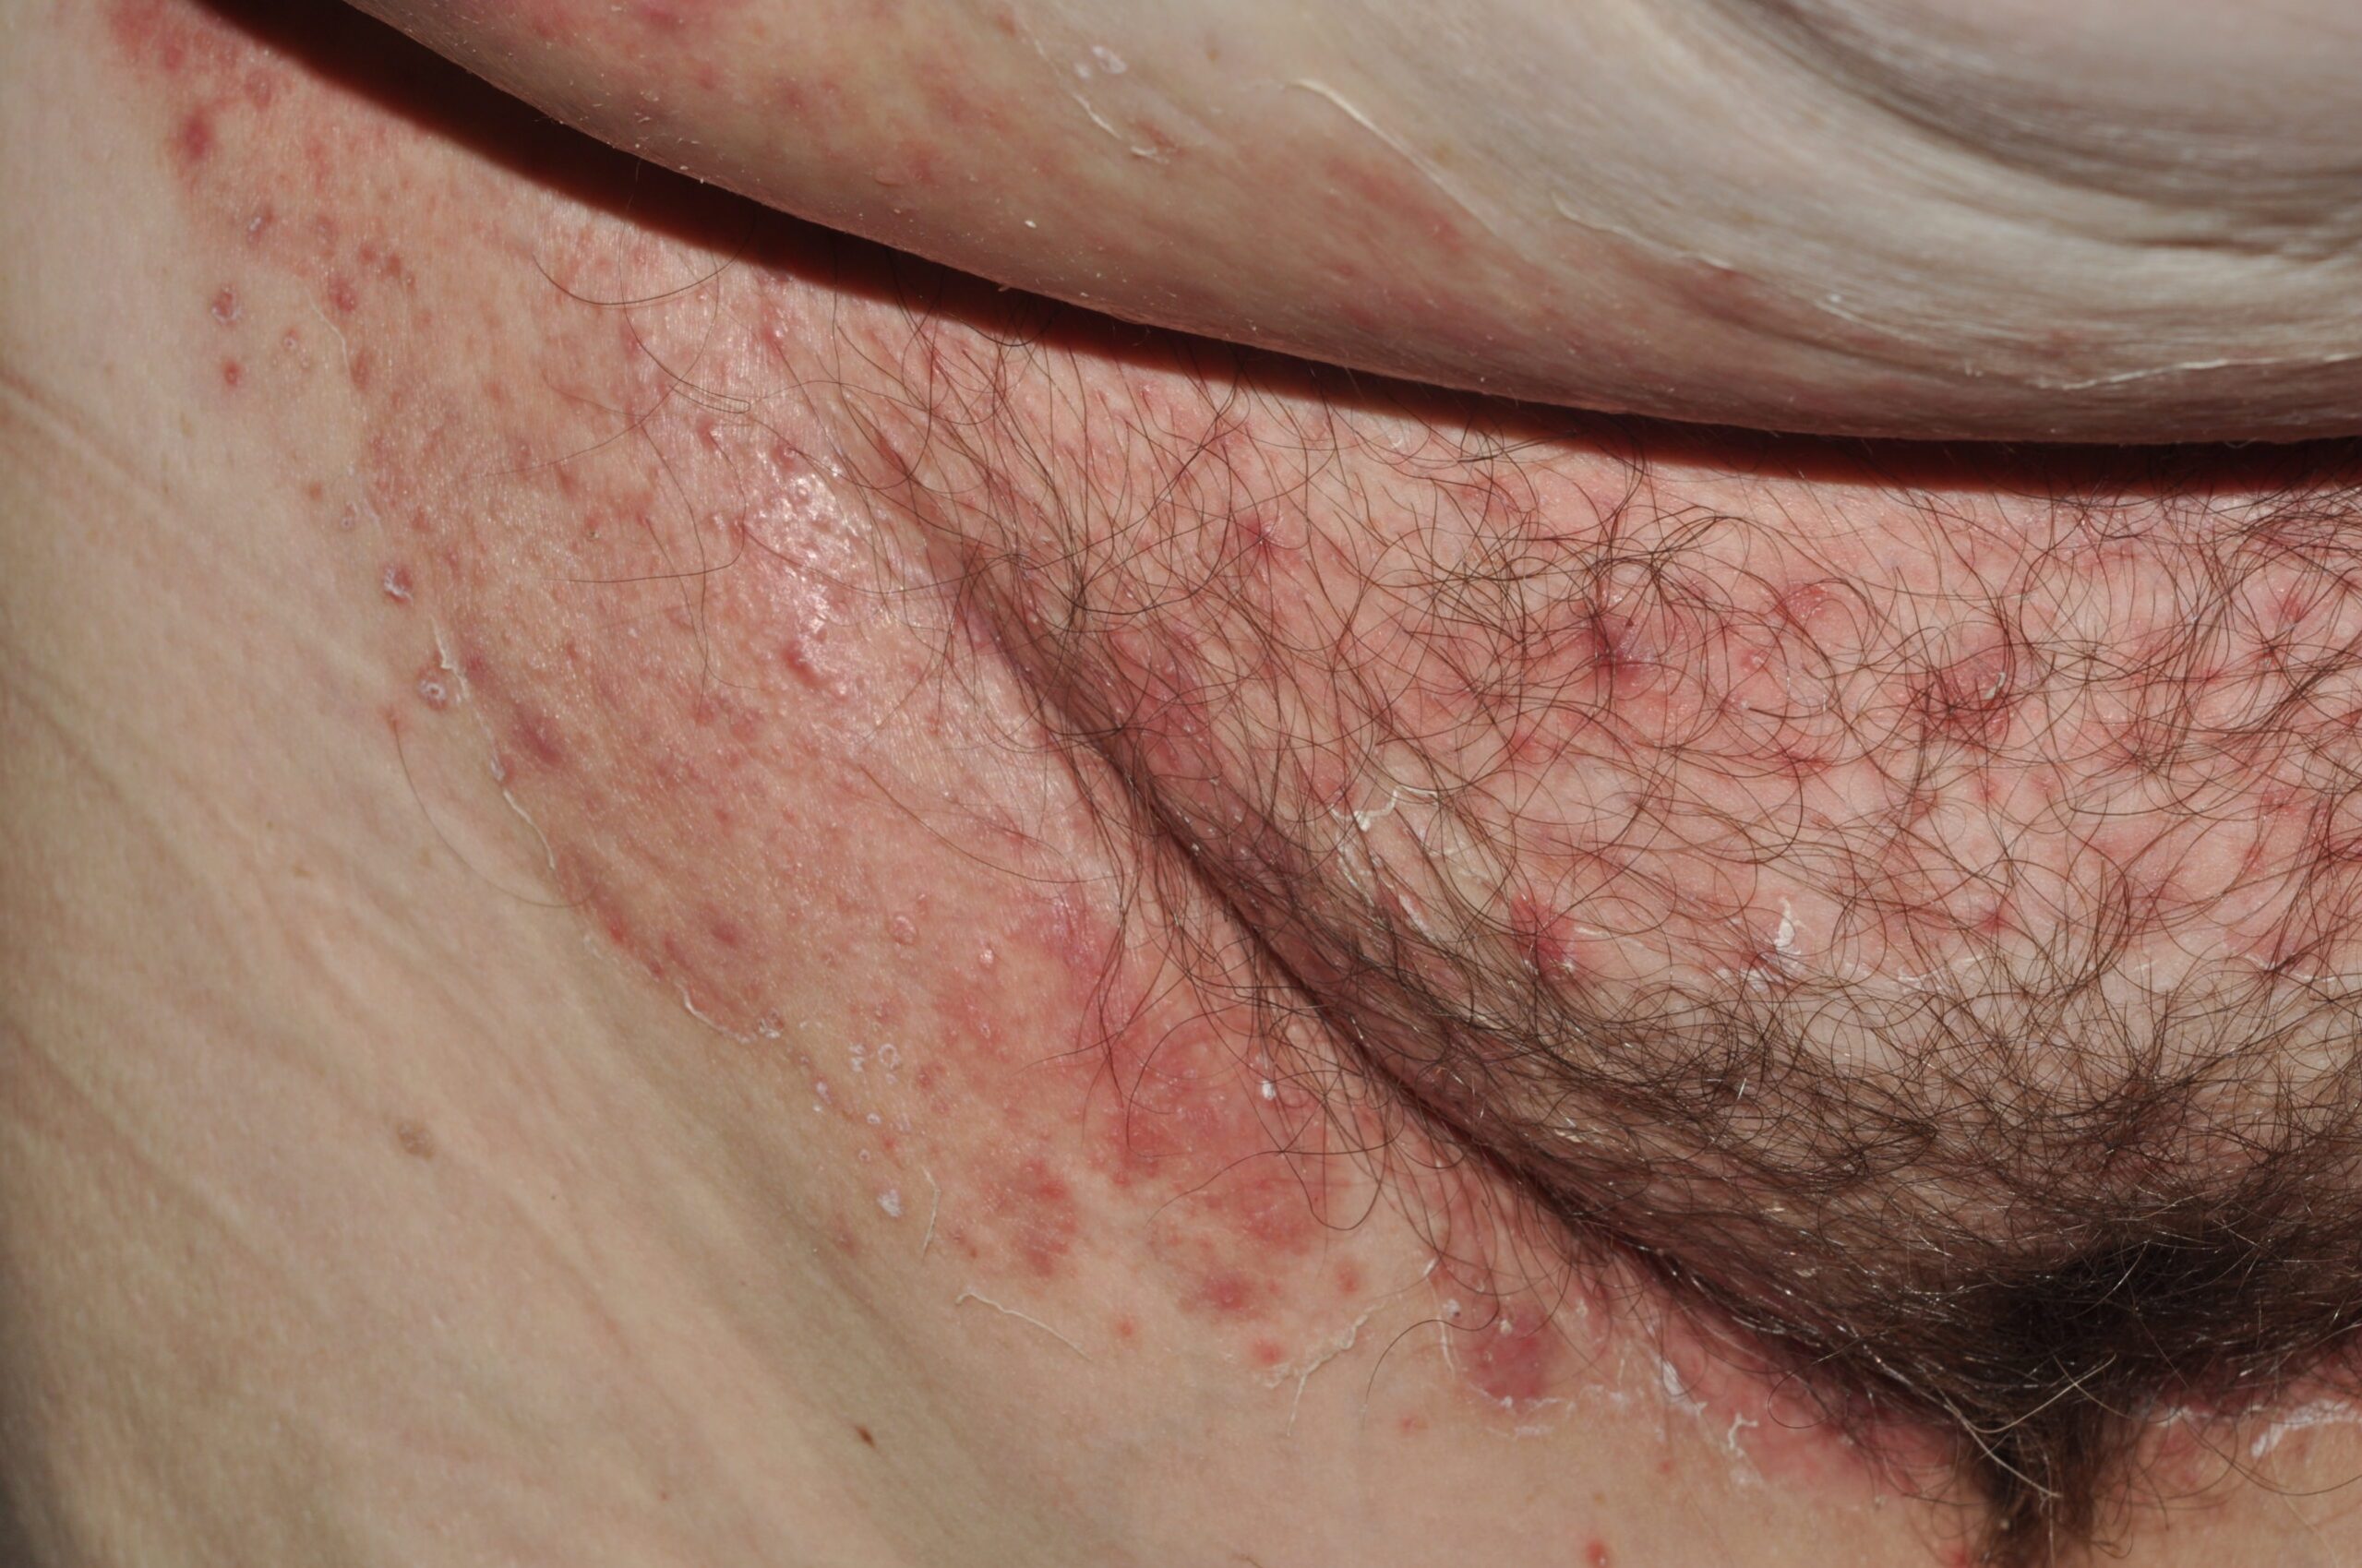
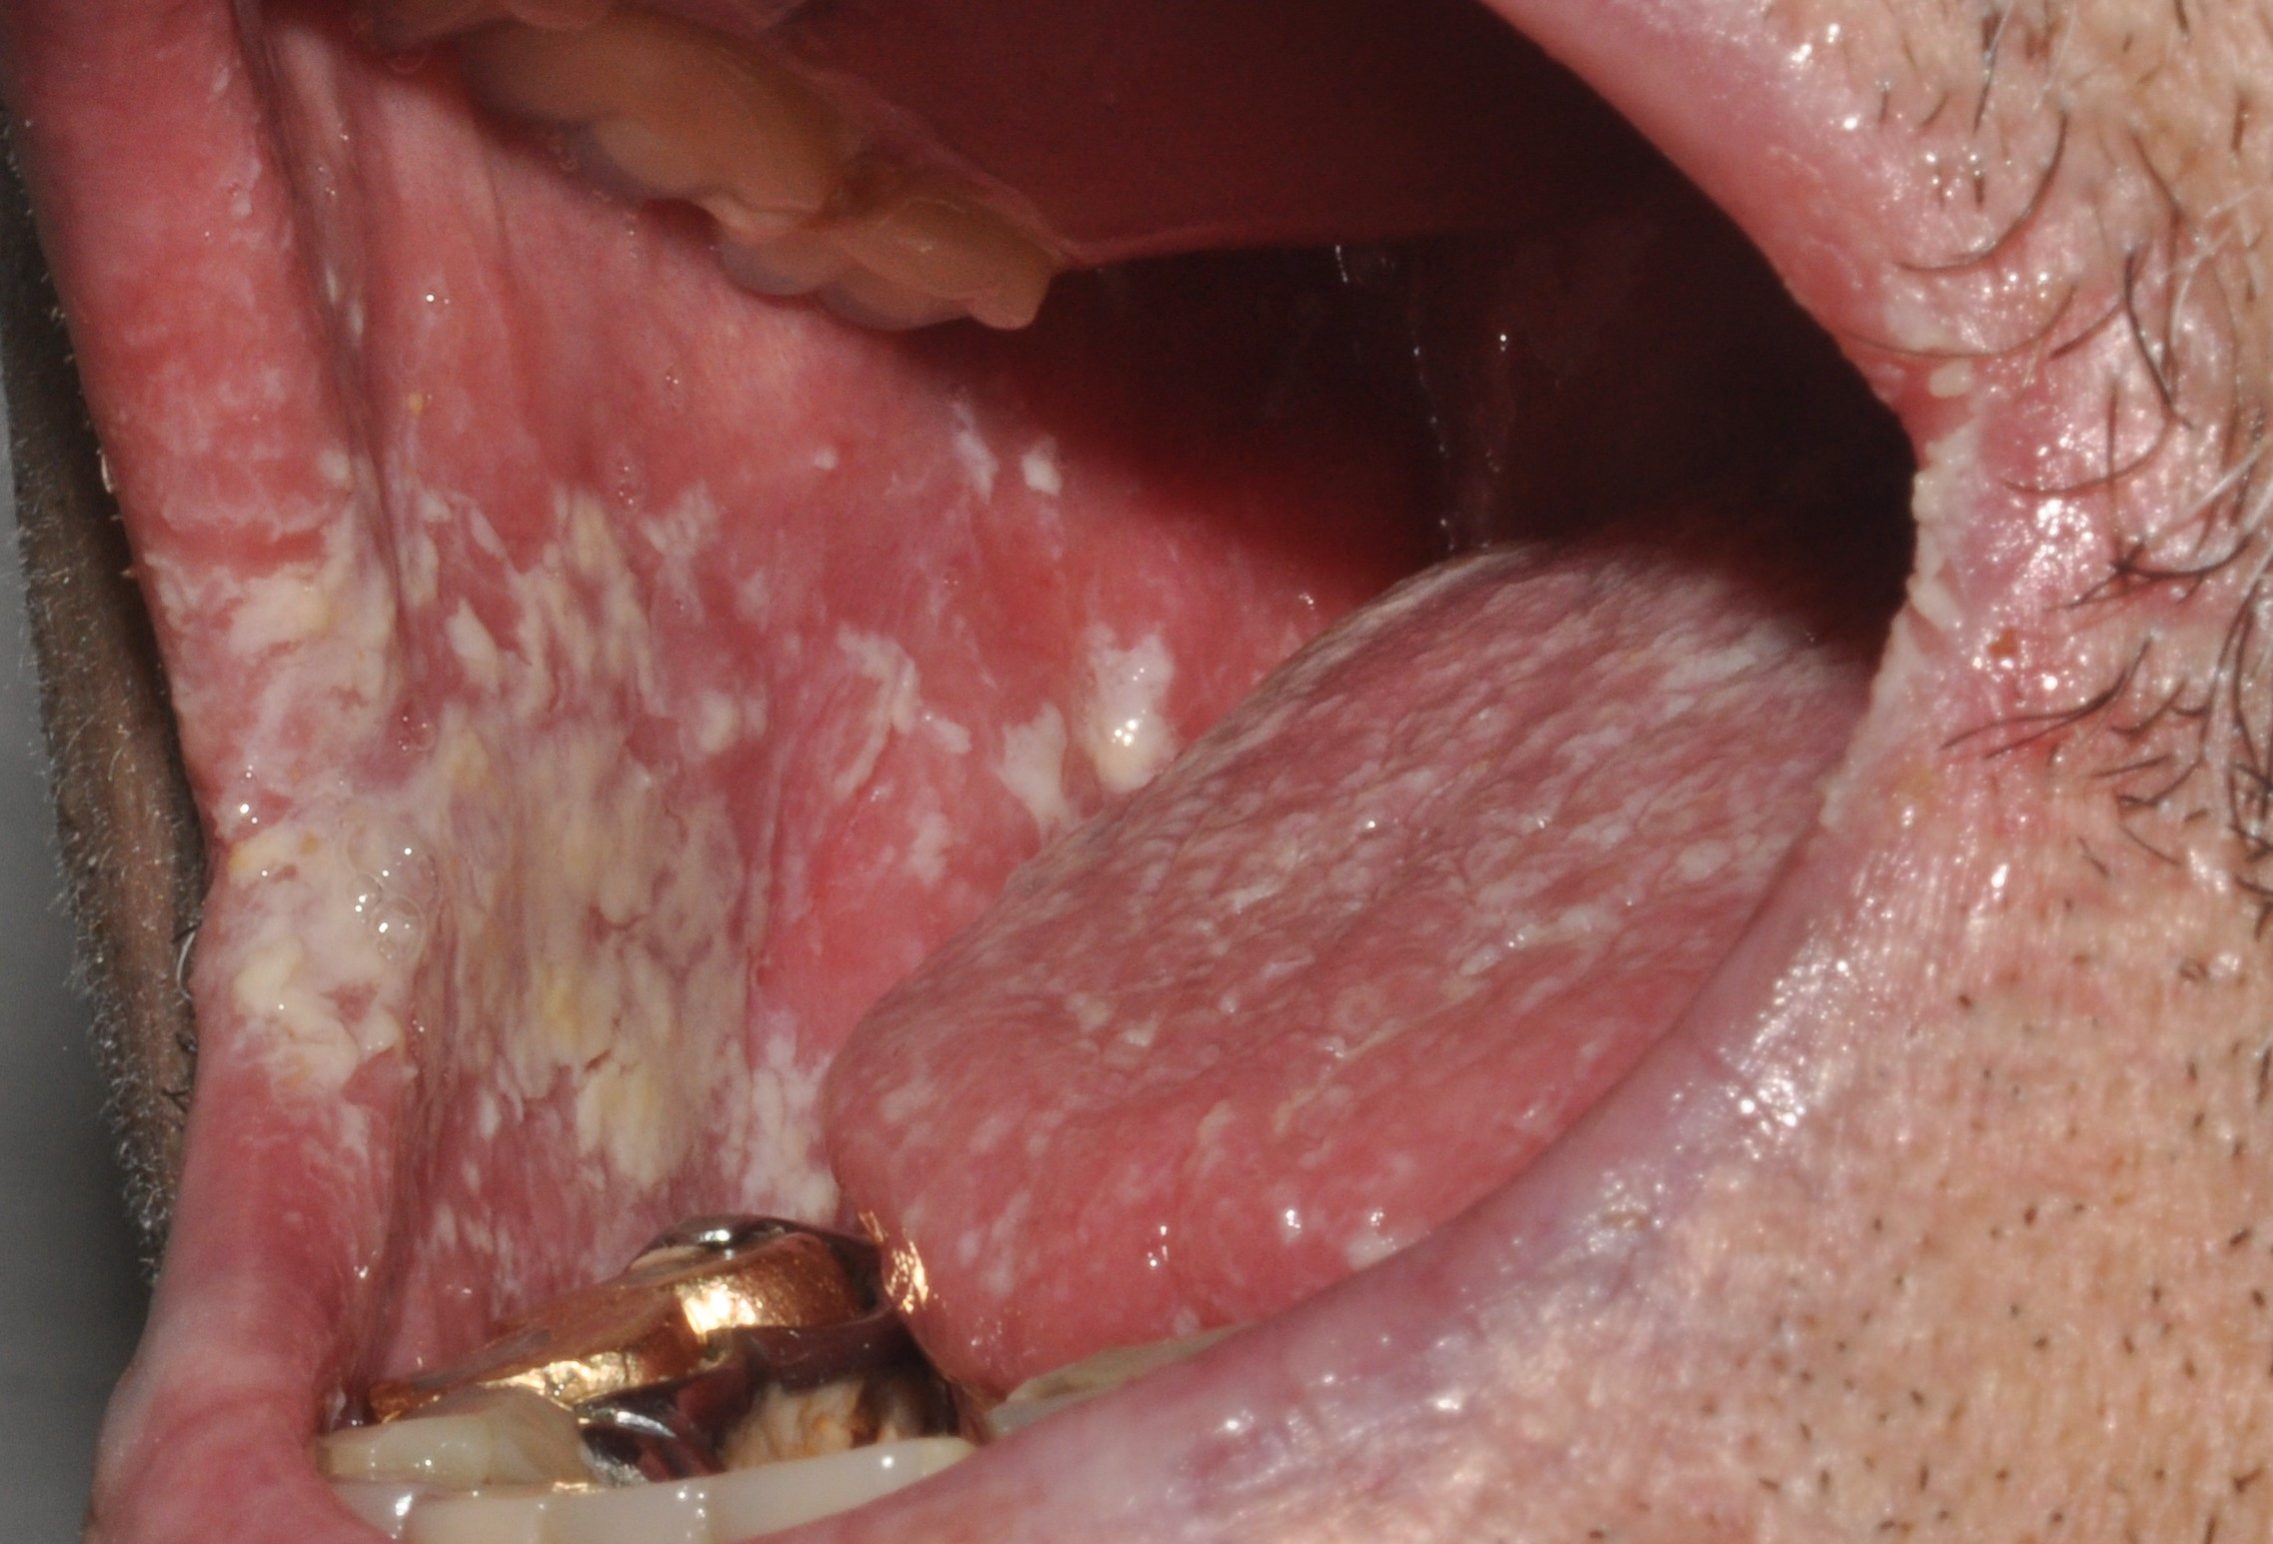
C. albicans se encuentra como un comensal inofensivo en una gran parte de la población humana, colonizando las mucosas oral, gastrointestinal y genital de manera asintomática. Sin embargo, si se altera la integridad de la barrera y/o las respuestas inmunitarias del huésped, el hongo puede infectar el epitelio de la piel o las mucosas o migrar a su través y acceder a nichos anatómicos profundos. Cuando infecta la piel suele afectar las áreas intertriginosas de los grandes pliegues; las mucosas infectadas principalmente por C. albicans son la vaginal (candidiasis vulvovaginal, CVV), la oral y la faríngea (candidiasis orofaríngea, COF) y la esofágica (candidiasis esofágica). También puede infectar las uñas (onicomicosis). La CVV y la COF puede ocurrir en personas con inmunidad normal, aunque son más frecuentes y tienen mayor gravedad y más tasas de recurrencia en personas inmunodeprimidas.
Las infecciones mucosas son muy comunes y se caracterizan por una hiperproliferación fúngica y por la respuesta inmunoinflamatoria del huésped, que es la causante de la sintomatología. Se calcula que el 75% de las mujeres en edad fértil han padecido al menos un episodio de candidiasis vaginal y el 5% sufre de candidiasis vaginal recurrente (Cooke G, 2022). La candidiasis sistémica afecta sitios corporales estériles como el torrente sanguíneo y, desde allí, puede involucrar el sistema nervioso central (SNC), hígado, bazo, corazón y los riñones. La candidiasis sistémica produce una elevada mortalidad a pesar del tratamiento antimicótico (Pappas PG, 2018).
El éxito de C. albicans como patógeno humano depende en gran medida de sus factores de virulencia: 1) secreción de moléculas de adhesión para la adherencia a las células del huésped y la invasión de los epitelios, 2) secreción de hidrolasas para fragmentar la membrana celular y la obtención de energía, 3) capacidad de transformación de levadura a célula filamentosa o hifa, con capacidad de penetración 4) capacidad de adaptación a diferentes nichos de huésped, flexibilidad genética, bioquímica y morfológica y, además, 5) la formación de biofilms que proporciona protección adicional contra condiciones ambientales adversas (Polke M, 2015; Lopes JP, 2022). Si bien las diferentes cepas de cándida comparten similitudes en ciertas estrategias de infección, como la adhesión e invasión de tejidos, difieren significativamente en aspectos clave de su biología, interacción con células inmunitarias, estrategias de daño al huésped y adaptaciones metabólicas (Katsipoulaki M, 2024).
3.3.1. Adhesión e invasión del epitelio
La pared del hongo ha de ser suficientemente robusta para mantener su forma de levadura y al mismo tiempo tener elasticidad para adaptarse a diferentes tipos de estrés ambiental presenes en los distintos nichos.
La morfología celular de C. albicans y su capacidad de adherencia a los tejidos del anfitrión dependen de la composición de su pared celular. Posee 2 capas: la interna formada por quitina, β-glucanos y manoproteínas; la externa está enriquecida con fibrillas de manano ancladas a manoproteínas de la capa interna (Gow NAR, 2017). La quitina representa alrededor del 2-3% del peso de la pared de la levadura, pero es fundamental para su integridad. Los β-glucanos son los principales polisacáridos estructurales y significan el 50-60% de la masa de la pared (Klis FM, 2001). La pared celular sirve, además, de andamiaje de las proteínas adhesinas.
La adhesión de C. albicans a las células epiteliales es seguida por la formación de hifas, que luego pueden penetrar activamente la membrana plasmática de las células epiteliales. Los factores de adhesión e invasión son importantes porque C. albicans ha de fijarse e invadir diferentes superficies (piel, mucosa oral, intestinal, endotelio vascular) e incluso dispositivos médicos para colonizarlos. La adhesión de C. Albicans a las células del anfitrión es crucial para iniciar y mantener la relación de comensal, además de servir para la colonización de los tejidos. En la pared de C. Albicans se han identificado 5 adhesinas estructuralmente relacionadas (Hwp1, Mnt1, Iff4, Int1p, Eap1, Mp65) dependientes de glicosilfosfatidilinositol. Durante el crecimiento de las hifas se expresa en su pared la proteína hifal 1 (Hwp1), una adhesina necesaria tanto para la virulencia como para el apareamiento. Hwp1 es una manoproteína expresada en la superficie de las hifas de C. albicans que facilita la adherencia a las células epiteliales orales al mimetizar proteínas ricas en prolina, sustrato natural de las transglutaminasas asociadas a estas células. Participa también en la formación de la pared celular y en la producción de biofilms. Iff4 es un miembro de una familia de 12 proteínas que se expresan en la superficie celular y apoyan la adherencia a las células epiteliales orales. Int1p es una proteína similar a integrina, cuyos ligandos son la laminina, y el colágeno tipo I y IV del anfitrión. Eap1 (adherencia aumentada a poliestireno) es una adhesina que interviene en la unión al poliestireno presente en los implantes médicos. Mp65 también favorece la adherencia al plástico y, al tener actividad de glucagonasa, modifica la estructura de la pared celular para capacitar la expresión de otras adhesinas y de su función (Silva PA, 2024).
La invasión de células y tejidos del anfitrión se puede conseguir por 2 vías: la penetración activa y la endocitosis inducida. La penetración activa se logra mediante el crecimiento de las hifas en el tejido del huésped. Es la ruta predominante de invasión en el epitelio oral y la única detectada en los enterocitos. El tracto gastrointestinal es un reservorio importante para C. albicans y el traspaso de la barrera intestinal (traslocación) es la fuente más común de candidiasis sistémica. La traslocación puede favorecerse en caso de patologías gastrointestinales o por intervenciones médicas o quirúrgicas. C. albicans ejerce una presión sobre la membrana celular de los enterocitos con la finalidad estirarla y romperla mediante el crecimiento de las hifas combinado con la secreción de factores de virulencia. Simultáneamente los enterocitos del anfitrión experimentan procesos de expansión y reparación de membranas originando el “bolsillo de invasión” donde la hifa invasora está rodeada por la membrana del hospedador (Westman J, 2019). El espacio confinado alrededor de la hifa, dentro del bolsillo de invasión, permite la acumulación de factores de virulencia secretados por C. albicans a elevadas concentraciones que todavía causan más daño y estrés al anfitrión (Allert S, 2018). En la endocitosis inducida intervienen las proteínas fúngicas Ssa1 y Als3 (adhesina-invasina) de la pared celular. Estas proteínas se unen a las cadherinas E y N en las células epiteliales y endoteliales respectivamente, así como al receptor del factor de crecimiento epidérmico (EGFR) de las células epiteliales, lo que favorece la captación de las células fúngicas. La unión al receptor provoca la reorganización y la remodelación del citoesqueleto del huésped, lo que origina la formación de pseudópodos que envuelven al hongo y lo atraen hacia la célula epitelial (Solis NV, 2017).
3.3.2. Secreción de hidrolasas y obtención de energía
Para facilitar la penetración activa de los epitelios las hifas de C. albicans expresan tres clases diferentes de hidrolasas: las proteasas aspárticas, fosfolipasas y lipasas que actúan como factores de virulencia y se acumulan en el bolsillo de invasión. Las proteasas aspárticas (Saps) comprenden diez miembros, de los cuales unos son secretados (Sap1–8) mientras que los otros 2 permanecen ligados a la superficie celular (Sap9–10). Degradan las membranas celulares del huésped, las proteínas y la matriz extracelular liberando nutrientes. También son importantes en la formación de biopelículas y la modulación de las respuestas inmunitarias del huésped a través del deterioro de las funciones de los neutrófilos y monocitos/macrófagos y contribuyen a la resistencia a los antimicóticos (Bras G, 2024). Las fosfolipasas se secretan extracelularmente y actúan a través de la interrupción de la formación de las membranas de la célula huésped. Constan de 10 miembros (Lip1–10) pero se han identificado las codificadas por PLA, PLB, PLC y PLD, siendo PLB1 necesaria para la virulencia y la invasión ya que hidroliza las uniones de los ésteres de glicerofosfolípidos de la membrana celular del anfitrión. Las lipasas intervienen en la virulencia de Cándida ya que favorecen la transición morfológica, la colonización, la citotoxicidad y la penetración, mejorando así su supervivencia dentro del huésped (Angiolella L, 2024).
C. albicans también expresa y secreta candidalisina, una toxina peptídica α-helicoidal codificada por el gen ECE1 (Naglik JR, 2019). En altas concentraciones, la candidalisina interactúa con las membranas celulares para formar estructuras similares a poros que dañan la membrana celular del epitelio del hospedador. Antes de insertarse y originar los poros, la candidalisina forma polímeros y bucles en solución acuosa. Los poros filtran el contenido citoplasmático de la célula epitelial hacia el bolsillo de invasión, proporcionando nutrientes esenciales para el hongo incluyendo colágeno, laminina, fibronectina, inmunoglobulinas e incluso hierro y zinc. Proteínas específicas se unen a estos micronutrientes, que luego son endocitados o transportados a través de la pared fúngica. Al tratarse de una proteína extraña, la candidalisina también es importante para la activación de la respuesta inmune específicas de las mucosas y, en su caso, del resto de los tejidos. La candidalisina es un factor clave de la activación de las células inmunes del anfitrión, el reclutamiento de neutrófilos y la inmunidad de tipo 17. Se considera el primer factor de virulencia clásico verdadero de C. albicans, pero también desencadena respuestas inmunitarias protectoras. En la mucosa oral, tras la endocitosis de los filamentos hifales mediada por Als3, alrededor de las hifas se forma una vacuola endocítica con una alta concentración de candidalisina que potencia el daño en las células epiteliales orales. Cuando la candidalisina forma poros en la membrana plasmática de las células epiteliales, activa una red de respuesta basada en la activación del receptor del factor de crecimiento epidérmico. Por tanto, además de la capacidad de la candidalisina para dañar las membranas celulares también tiene propiedades inmunoestimulantes (Russell CM, 2023).
3.3.3. Capacidad de transformación de levadura a hifa (y viceversa)
C. albicans es capaz de cambiar de manera reversible entre diferentes formas de crecimiento y morfologías dependiendo de las condiciones ambientales. Puede crecer como levaduras unicelulares redondeadas o hacerse filamentoso y crecer como pseudohifas, más cortas y estrechas, o como hifas verdaderas (sin invaginaciones en las uniones septales). Este cambio morfológico es uno de sus principales factores de virulencia. En forma de levadura las cándidas actúan como comensales colonizadores de los epitelios mucosos, pero también pueden encontrarse en sangre una vez han atravesado las paredes del aparato digestivo y la pared vascular. Tienen la forma adecuada para la diseminación a distancia. En la forma hifal poseen filamentos para la invasión tisular. La filamentación de C. albicans implica una transformación compleja que ocurre en entornos diversos a través de una red intrincada de diferentes mecanismos reguladores. Esta transformación va acompañada de un cambio extenso en el perfil de expresión génica, tanto en los genes de la estructura de su pared celular como en los de la expresión de muchos factores de virulencia.
La forma de levadura le permite la colonización de nichos comensales superficiales mientras que la forma hifal es la forma invasiva del hongo que facilita a C. albicans penetrar las barreras del huésped y alcanzar los tejidos profundos (Lopes JP, 2022). C. albicans puede cambiar su morfología de levadura, redonda u ovoide (blastoconidia) a filamentosa y elongada (hifa y pseudohifa). Los elementos hifales le otorgan mayor virulencia y más capacidad de evadir el sistema inmune. Las hifas pueden causar daño tisular al invadir las células epiteliales de la mucosa intestinal y provocar una infección de la sangre tras atravesar el endotelio (Chen H, 2020). La importancia de la capacidad de transformación se demuestra por el hecho de que las cepas no filamentosas de C. albicans no son virulentas.
Algunos estímulos para el crecimiento en forma de levadura unicelular son temperaturas más bajas, pH más ácido, ausencia de suero y altas concentraciones de glucosa. El cambio a la morfología hifal puede ser desencadenado por muchos factores ambientales presentes en los nichos del anfitrión, como las temperaturas fisiológicas superiores a 36ºC, la inanición, un pH ambiental de mayor de 7, la presencia de N-acetilglucosamina o los niveles elevados de CO2 (Mayer FL, 2013). El desarrollo de las hifas también puede estar desencadenado por la presencia de peptidoglicano, un componente de la pared celular bacteriana de particular relevancia en las interacciones hongo-anfitrión-microbiota (Li H, 2022). Otros factores que inician las vías de señalización e inducen el cambio de morfología son el contacto de C. albicans con superficies abióticas o con células del anfitrión. Ambos contactos estimulan la formación de hifas y la inducción simultánea de las adhesinas asociadas a ellas.
La morfogénesis de las hifas está regulada por una red de señalización compleja que incluye la vía de la proteín-quinasa A de AMPc. Los efectores posteriores de esta vía, Efg1 y Nrg1, funcionan, como un activador y un represor de la filamentación in vivo, respectivamente (Wakade RS, 2022). Una de estas vías está codificada por un primer grupo de genes encargados de la filamentación como EFG1, Ras1, CYR1 y CPH1, además de péptidoglicanos bacterianos en el suero humano, la nutrición limitada y bajos niveles de oxígeno. Por el contrario, los genes Nrg-1 -Rog1- Tup1 y Rbf1 median dos vías inhibitorias del cambio de levadura a hongo filamentoso. Dfg5 y Dcw1 actúan en la biogénesis de la pared fúngica a través de la reticulación de las glicoproteínas, desempeñando así un papel clave en la integridad de dicha pared. Mutaciones Dfg5 y Dcw1, así como una mutación knockout de hog1, dan como resultado la desregulación de la síntesis de quitina, lo que origina un defecto de separación celular. Las mutaciones heterocigotas y condicionales en Dfg5 y Dcw1 resultaron en niveles de transcripción disminuidos de cst20, un regulador positivo de la morfogénesis hifal, pero también produjeron mayores niveles de los cinco reguladores negativos de la morfogénesis de las hifas: Tup1, Nrg1, Mig1, Rbf1 y Rfg1. Como consecuencia, las mutaciones de Dfg5 y Dcw1 afectaron la capacidad de C. albicans de causar candidiasis oral en ratones (Razmi M, 2024).
3.3.4. Adaptación a los nichos del huésped y adquisición de nutrientes
Las Cándidas forman parte de la microbiota humana comensal que, en condiciones normales, coloniza de forma asintomática varios nichos del huésped como la piel, la cavidad oral, el tracto gastrointestinal y el tracto urogenital (Cauchie M, 2017). Para producir la infección y sobrevivir en el interior del anfitrión humano, Cándida ha tenido que desarrollar algunas estrategias como mecanismos para evadir la vigilancia inmunológica y adaptarse a diferentes microambientes o nichos, donde pueden ocurrir limitaciones de nutrientes (glucosa, carbono, hierro, zinc), fluctuaciones de pH, privación de oxígeno, cambios de temperatura o exposición a estreses oxidativos, nitrosativos y catiónicos. De ello dependen su patogenicidad y virulencia (Alves R, 2020).
Para escapar de la muerte oxidativa provocada por las células inmunes, C. albicans posee seis superóxido dismutasas (Sods), todas ellas involucradas en la desintoxicación de especies reactivas de oxígeno (ROS), al convertir O2− en oxígeno molecular y peróxido de hidrógeno. Las proteínas antioxidantes fúngicas adicionales y los genes de reparación del daño del ADN ayudan a atenuar el estrés oxidativo y esto ayuda al hongo a contrarrestar ROS tóxicos producidos por células inmunes innatas, antes y durante el ataque fagocítico. C. albicans contrarresta el estrés oxidativo exógeno agudo induciendo genes implicados en la desintoxicación de ROS (p. ej., catalasa y superóxido dismutasa), la síntesis de antioxidantes (p. ej., glutatión y tiorredoxina) y la reparación del daño mediado por ROS al ADN, proteínas y lípidos (Schatzman SS, 2020). Las ROS dañan la función de la membrana celular fúngica y la integridad de la pared celular, lo que finalmente conduce a la muerte de la levadura (Basotra SD, 2024).
En cuanto a la disponibilidad de nutrientes, tras la infección por C. Albicans, las células inmunes se activan y remodelan su metabolismo para cumplir con el proceso de demanda de energía para generar una respuesta inmune. Esto incluye una mayor captación de glucosa y su procesamiento por parte de los macrófagos a través de la glucólisis aeróbica, lo que deja un ambiente con escasez de glucosa para el hongo. Por otro lado, Cándida modula sus vías metabólicas para adaptarse al entorno habitualmente hostil del hospedador, como el interior de los fagolisosomas (Pellon A, 2022). La fuente de carbono preferida por C. albicans en condiciones normales es la glucosa. Ahora bien, en la mayoría de los nichos de colonización (como el colon o los fagolisosomas), el crecimiento del hongo se produce en condiciones de escasez de glucosa. En estas situaciones, busca fuentes de carbono alternativas como los ácidos carboxílicos, los aminoácidos o la N-acetilglucosamina (GlcNAc) a través de la vía glucolítica y la gluconeogénesis. Estas vías se inducen después de la fagocitosis por macrófagos o neutrófilos (Williams RB, 2020).
La flexibilidad metabólica también es importante para la asimilación de micronutrientes como el hierro y el zinc, esenciales para la integridad estructural y los procesos fisiológicos en C. albicans. Ahora bien, en respuesta a la infección, a través de un proceso denominado inmunidad nutricional, el huésped limita la disponibilidad de estos micronutrientes y expone al hongo a niveles tóxicos de otras especies, como los iones de cobre. El hongo, como respuesta, activa estrategias eficientes de adquisición de estos micronutrientes. La captación de hierro de alta afinidad, implica una vía cíclica de reducción de las necesidades de hierro (hierro reductasa, ferroxidasa y permeasa de hierro). C. albicans promueva la absorción de hierro de la ferritina y la transferrina por medio de la adhesina e invasina Als3 Esta vía se activa para reemplazar la captación de ferritina-hierro de baja afinidad a través de la proteína Als3, que está operativa en las hifas durante condiciones de abundancia de hierro. También contribuyen a la captación de hierro, la captación mediada por sideróforos y la adquisición de hierro del hemo de la hemoglobina utilizando proteínas de la membrana extracelular del hongo con las que puede recolectar sideróforos sintetizados por otros microorganismos (Bairwa G, 2017). Durante la candidiasis invasiva, la homeostasis del hierro también se altera, lo que desencadena cambios en el paisaje renal de hierro. Así, en la médula renal el hierro se acumula, mientras que en la corteza renal los infiltrados leucocitarios forman zonas de exclusión de hierro alrededor de las lesiones fúngicas. En condiciones de bajo contenido de hierro, C. albicans FTR1 actúa como una permeasa de hierro de alta afinidad para promover la captación de hierro de la ferritina y la transferrina y es esencial para la virulencia durante la candidiasis sistémica. Además, se ha demostrado que la adhesina e invasina Als3 promueven la captación de hierro de la ferritina en el contexto de las interacciones de C. albicans con las células epiteliales orales (Lopes JP, 2022). La sobreexpresión de la catalasa, que desintoxica el peróxido de hidrógeno, mejora la resistencia al estrés oxidativo in vitro y, sin embargo, contrariamente a la intuición, reduce la virulencia del hongo. Esto se debe a que la sobreexpresión de esta abundante ferroproteína impone una demanda indebida del micronutriente esencial, el hierro, en condiciones limitantes de hierro in vivo (Pradhan A, 2017). En condiciones de limitación de zinc, C. albicans produce una proteína de unión a zinc, codificada por el gen PRA1, que recolecta zinc de los tejidos del huésped. Las células originadas en estas condiciones de limitación de zinc tienen un fenotipo hiperadherente y se denominan células Goliat. C. albicans utiliza dos mecanismos de captación para recolectar zinc. El primero, que opera principalmente a pH ácidos, implica la captación a través del transportador Zrt2 hacia el citoplasma. El segundo, que es funcional a pH neutro, implica la captación de zinc mediada por zincóforos a través de una proteína secretada, Pra1, y la captación a través del transportador Zrt1. C. albicans responde a la limitación de zinc formando células goliat (levaduras agrandadas y esféricas que exhiben una adhesión mejorada) y evita la toxicidad del zinc compartimentando rápidamente el zinc en vacuolas de almacenamiento llamadas zincosomas (Williams RB, 2020; Malavia D, 2028).
Otros factores estresantes que inducen la capacidad adaptativa incluyen cambios de pH, cambios térmicos y de osmolaridad, estrés nitrosativo. Muchas de las respuestas al estrés fúngico están moduladas por proteínas de choque térmico (Hsps), particularmente Hsp90.
3.3.5. La formación de biofilms
La mayoría de las infecciones por C. Albicans tanto las que se producen en las superficies mucosas (orales, digestivas o genitales) como las invasivas o las que se producen sobre dispositivos médicos (catéteres, dentaduras postizas, articulaciones protésicas o válvulas cardíacas implantadas) se asocian a la formación de biofilms. La formación de biofilms es un proceso complejo que se inicia con la adherencia de los microorganismos sobre la superficie de un epitelio o una superficie abiótica. Se trata de un proceso continuo que sigue las siguientes fases: 1) adhesión, 2) síntesis de matriz extracelular, inducida por quorum sensing, 3) maduración y 4) dispersión y diseminación. Estas fases conducen a la formación de una estructura uniforme en forma de agregados celulares rodeadas de una matriz de polímeros (Ponde NO, 2021).
Los biofilms constituyen una comunidad densa de células microbianas (bacterias u hongos, en ocasiones mixtos) embebidos y adheridos a una matriz de polímeros extracelulares. Son una fuente común de infección nosocomial y, por estructura, son inaccesibles a la terapia antimicrobiana (Pereira R, 2021). En el caso de Cándida, el contacto de hongo con las superficies estimula el crecimiento de las hifas, la producción de matriz extracelular y, por tanto, el desarrollo del biofilm. Éste madura hasta convertirse en una estructura organizada y robusta. En el biofilm se integran tanto adhesinas, como factores de la morfogénesis celular o de la producción de matriz extracelular. La formación de biofilms está controlada por una red transcripcional compleja de más de 1000 genes (Lohse MB, 2018). Incluyen miembros de la familia ALS (Agglutinin-Like Sequence), que codifican ocho proteínas de la pared fúngica ligadas a glicosilfosfatidilinositol (GPI) e intervienen en la unión a diversos sustratos del anfitrión. ALS 1, 3 y 5 (expresada en las hifas) y fomentan la adherencia a células de la mucosa oral. Las ALS actúan como un consorcio formando agregados a lo largo de la superficie celular y facilitando la aglutinación de las células fúngicas. La maduración del biofilm es seguida por la dispersión o diseminación de las levaduras que, si alcanzan el torrente circulatorio, puede acompañarse de una elevada mortalidad (Rajendran R, 2016). Las células que quedan dispersas serían las responsables de la candidemia y de su diseminación (Wall G, 2019).
La producción de biofilms es un proceso altamente regulado y coordinado. Entre las células fúngicas se desarrollan adhesiones interactivas y se producen cambios morfológicos. En el interior de los biofilms las levaduras están protegidas del estrés ambiental, incluso de las respuestas inmunes del huésped y del tratamiento antimicótico. Para controlar una infección por biofilms se requiere una intervención médica rápida, altas concentraciones de antibióticos y, en la mayoría de ocasiones, el reemplazo del dispositivo infectado, lo cual no está exento de riesgos (p.ej., el reemplazo de stents coronarios o de válvulas cardíacas).
En la clínica, se puede complicar aún más por la formación de biofilms multiespecie. Los biofilms mixtos se desarrollan por interacciones entre microorganismos de varias especies. Se han detectado biofilms mixtos de especies de Cándida in vivo y en las superficies de muchos instrumentos o implantes biomédicos (C. albicans puede asociarse con especies de Streptococcus y Actinomyces en muestras dentales) (Khan F, 2021). También se han detectado biofilms subgingivales mixtos en las superficies de implantes dentales por C. albicans, Fusobacterium nucleatum y Porphyromonas gingivalis lo que aumenta significativamente el número y la viabilidad de las bacterias periodontales (Bravo E, 2024) y en la candidiasis vulvovaginal (predominantemente de Lactobacillus), donde se incorporan en el biofilm mecanismos inmunes innatos locales (Czechowicz P, 2022).
En las candidiasis sistémicas (la mayoría de adquisición nosocomial) el hongo puede causar diferentes tipos de infección ajustando la expresión de su arsenal de factores de virulencia y atributos de aptitud al nicho local. Habitualmente se producen cuando C. albicans alcanza el torrente circulatorio por un catéter venoso central, aunque también son factores predisponentes la inmunodepresión (por corticoides o inmunosupresores), la diálisis, la antibioterapia de amplio espectro, la estancia en la UVI o la nutrición parenteral. No es raro que se sumen una combinación de estos factores (Ibañez-Nolla J, 2024). También pueden aparecer después de que la Candida se escape del aparato digestivo atravesando la mucosa intestinal y la pared endotelial (p.ej., por una cirugía mayor con rotura de la barrera intestinal) (Papon N, 2020). Desde allí C. albicans puede alcanzar cualquier nicho, incluyendo los riñones, el hígado, el bazo o el corazón, lo que tiene una mortalidad superior al 70% (Pappas PG, 2018).
En las candidemias también se pueden detectar biofilms de Cándida entre el 16 y el 100% de las muestras de sangre, con una tasa agrupada del 80,0% (IC: 67-90). En un estudio, la tasa de mortalidad en los casos de candidiasis sistémicas fue del 37,9%, de las cuales el 70,0% se asociaron a biofilms. C. tropicalis fue la especie más prevalente en la formación de biopelículas (67,5%) mostrando diferencias estadísticamente significativas en comparación con otras especies de Cándida. Finalmente, las tasas de resistencia antifúngica a fluconazol, voriconazol y caspofungina relacionadas con los biofilms fue del 70,5, 67,9 y 72,8%, respectivamente (Atiencia-Carrera MB, 2022).