Currículum
Tema 06. Micosis cutáneas
TEMA 06. MICOSIS CUTÁNEAS
0/0
1. INTRODUCCIÓN
0/2

2. DERMATOFITOSIS O TIÑAS
0/8
3. CANDIDIASIS
0/10
4. PITIRIASIS VERSICOLOR
0/7
5. BIBLIOGRAFIA
0/1
Imágenes tema

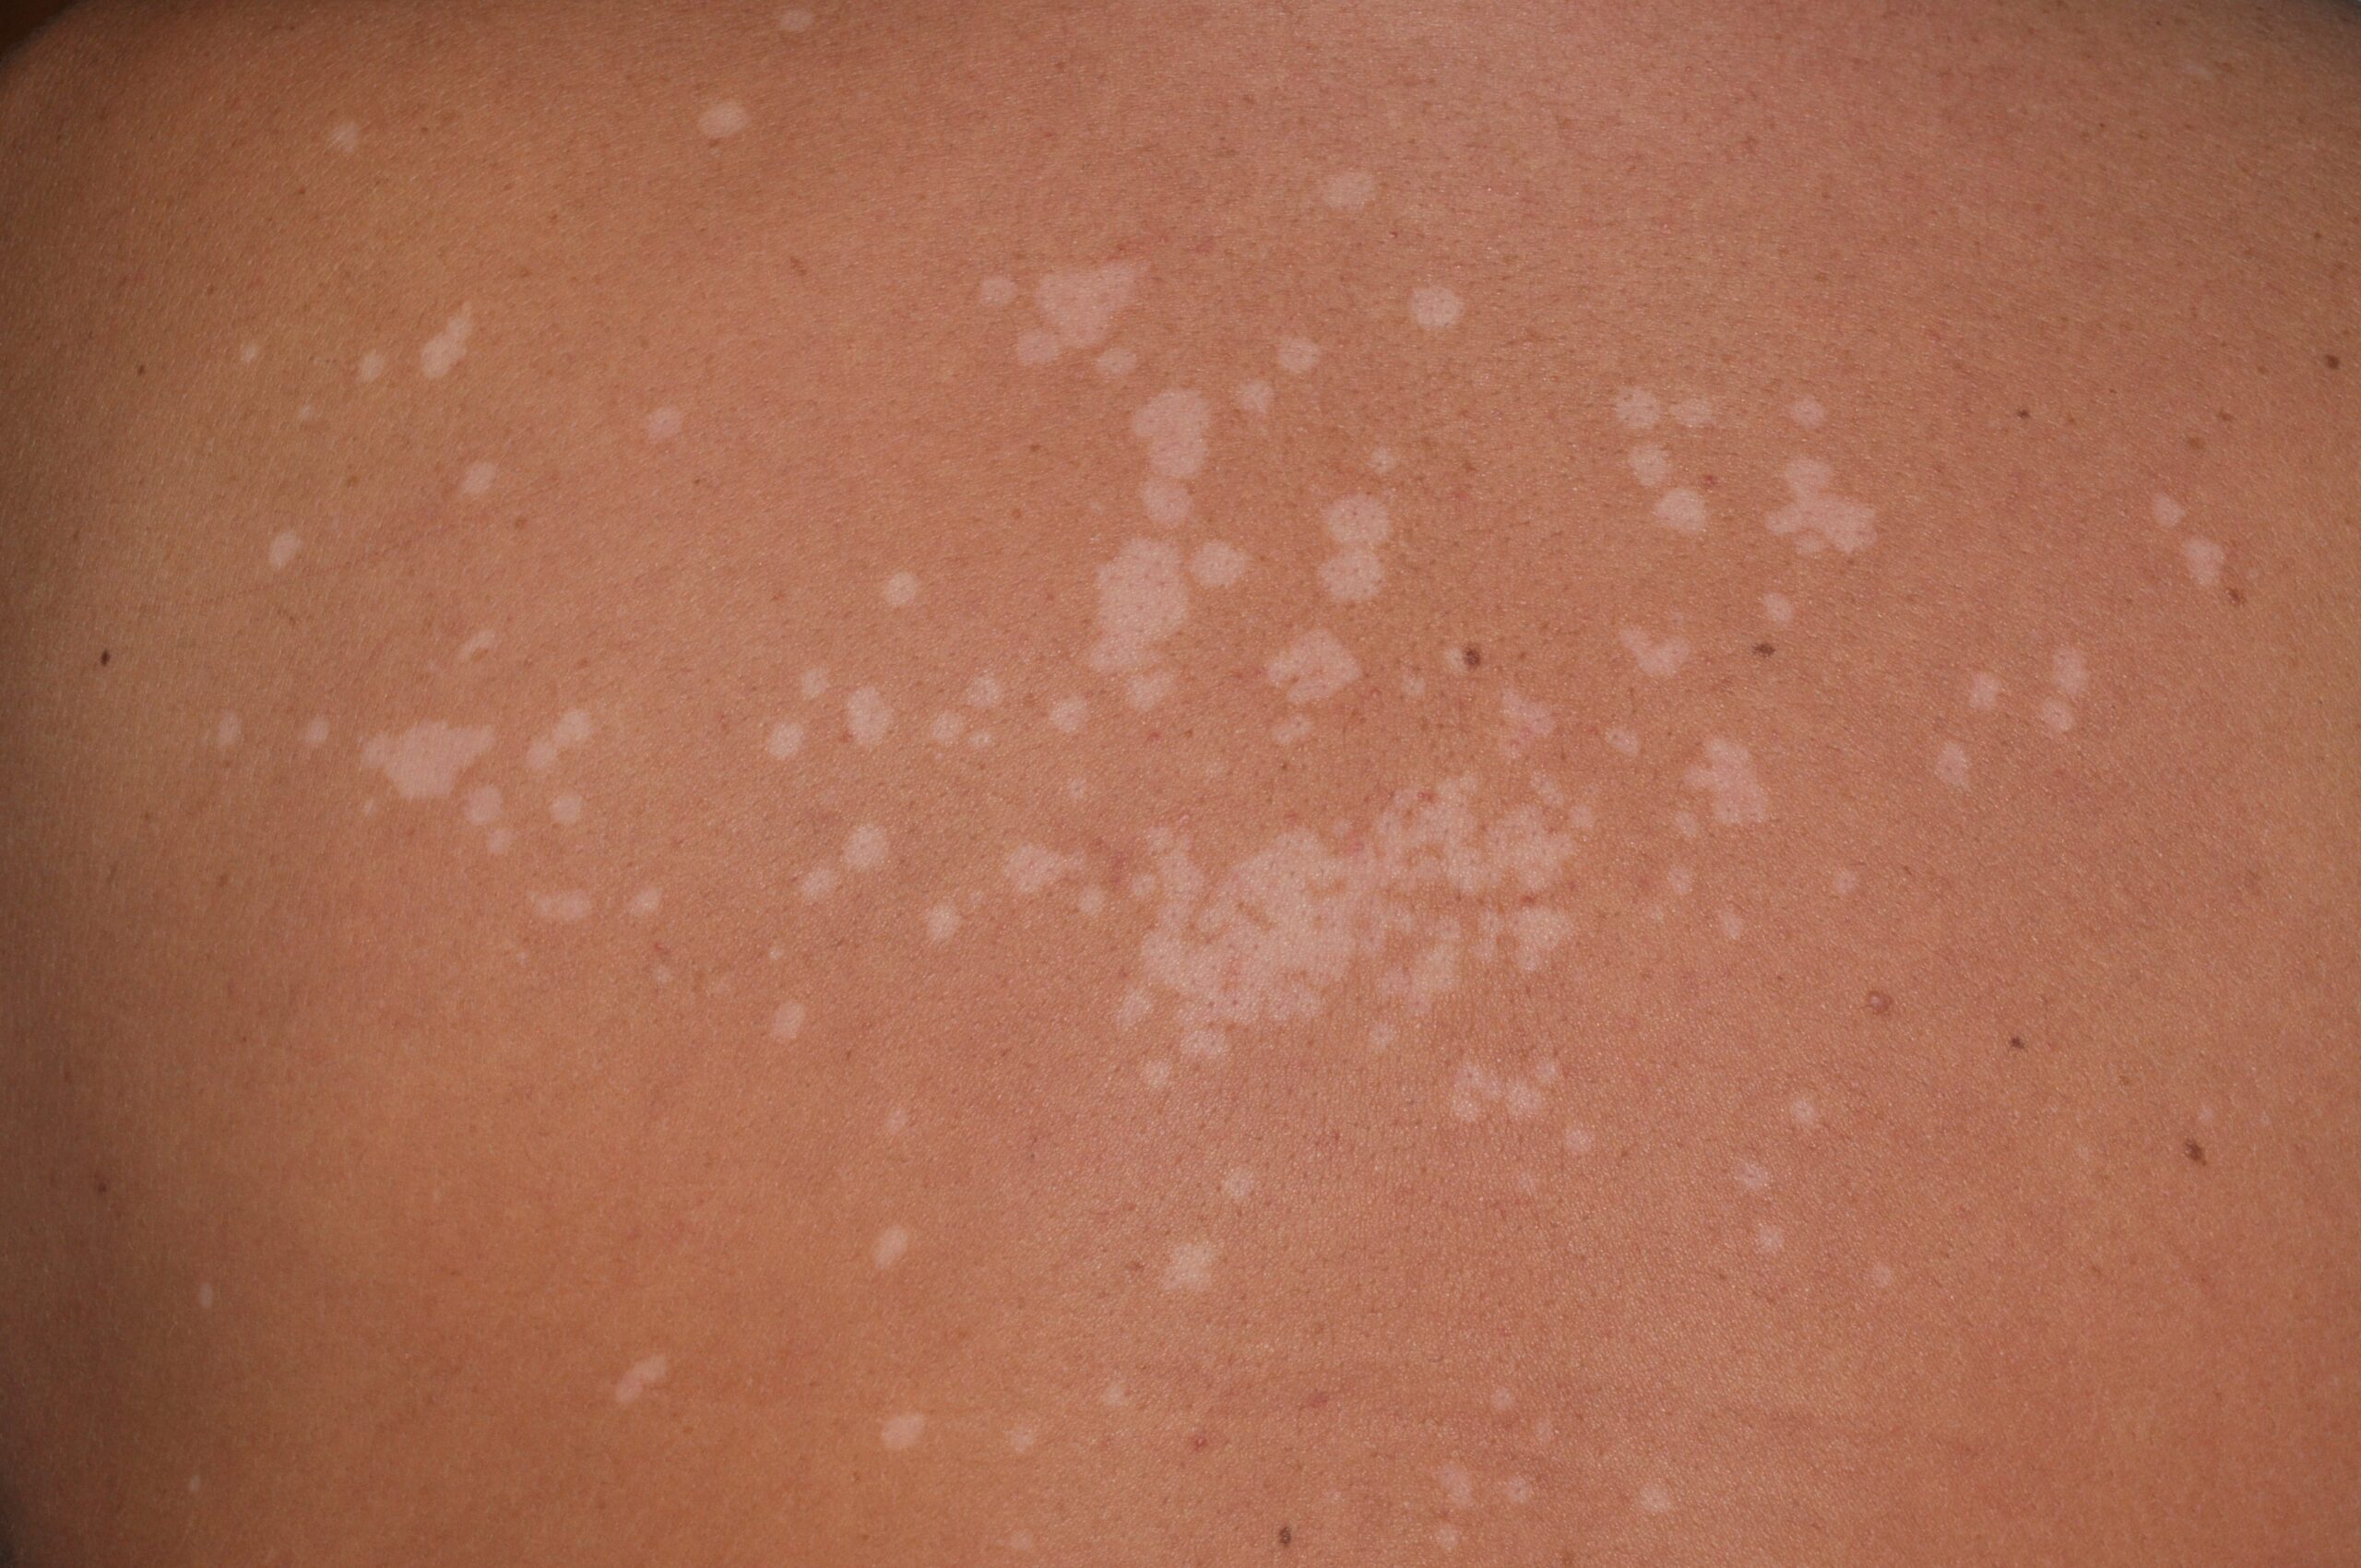
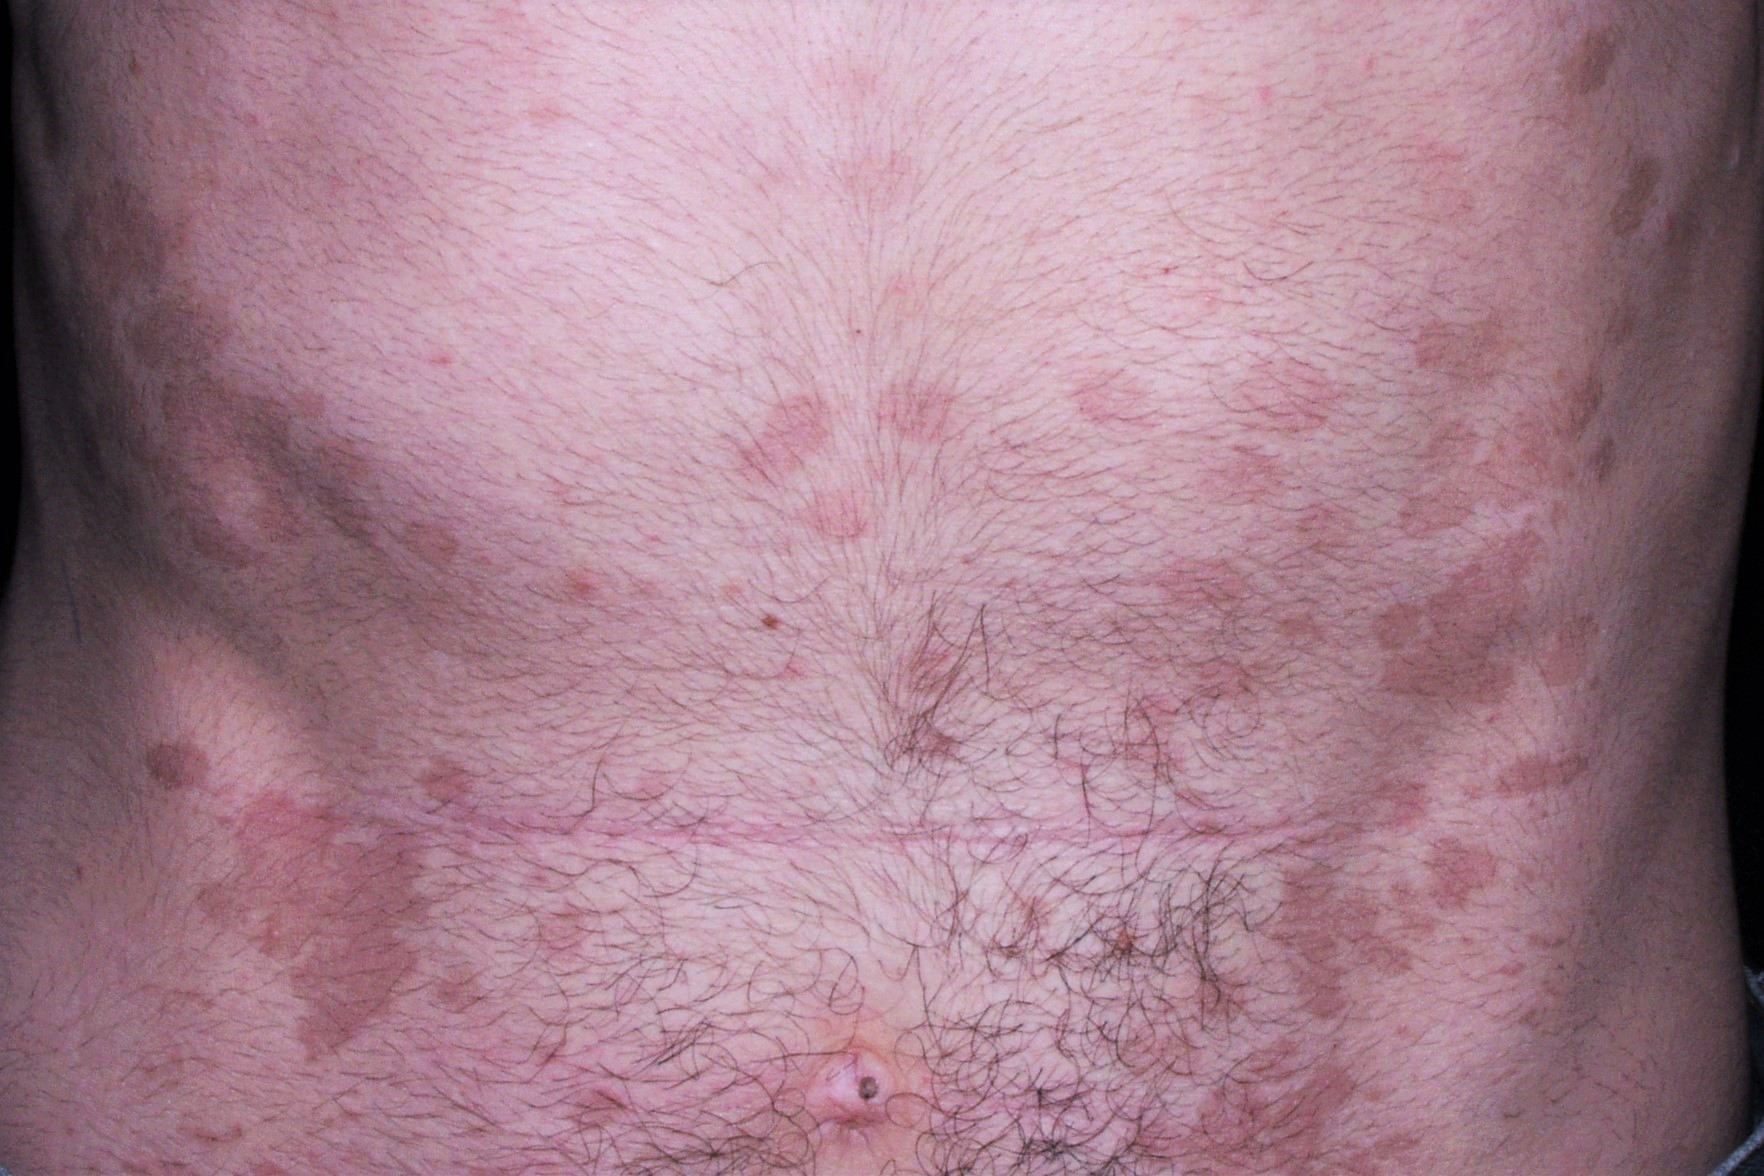
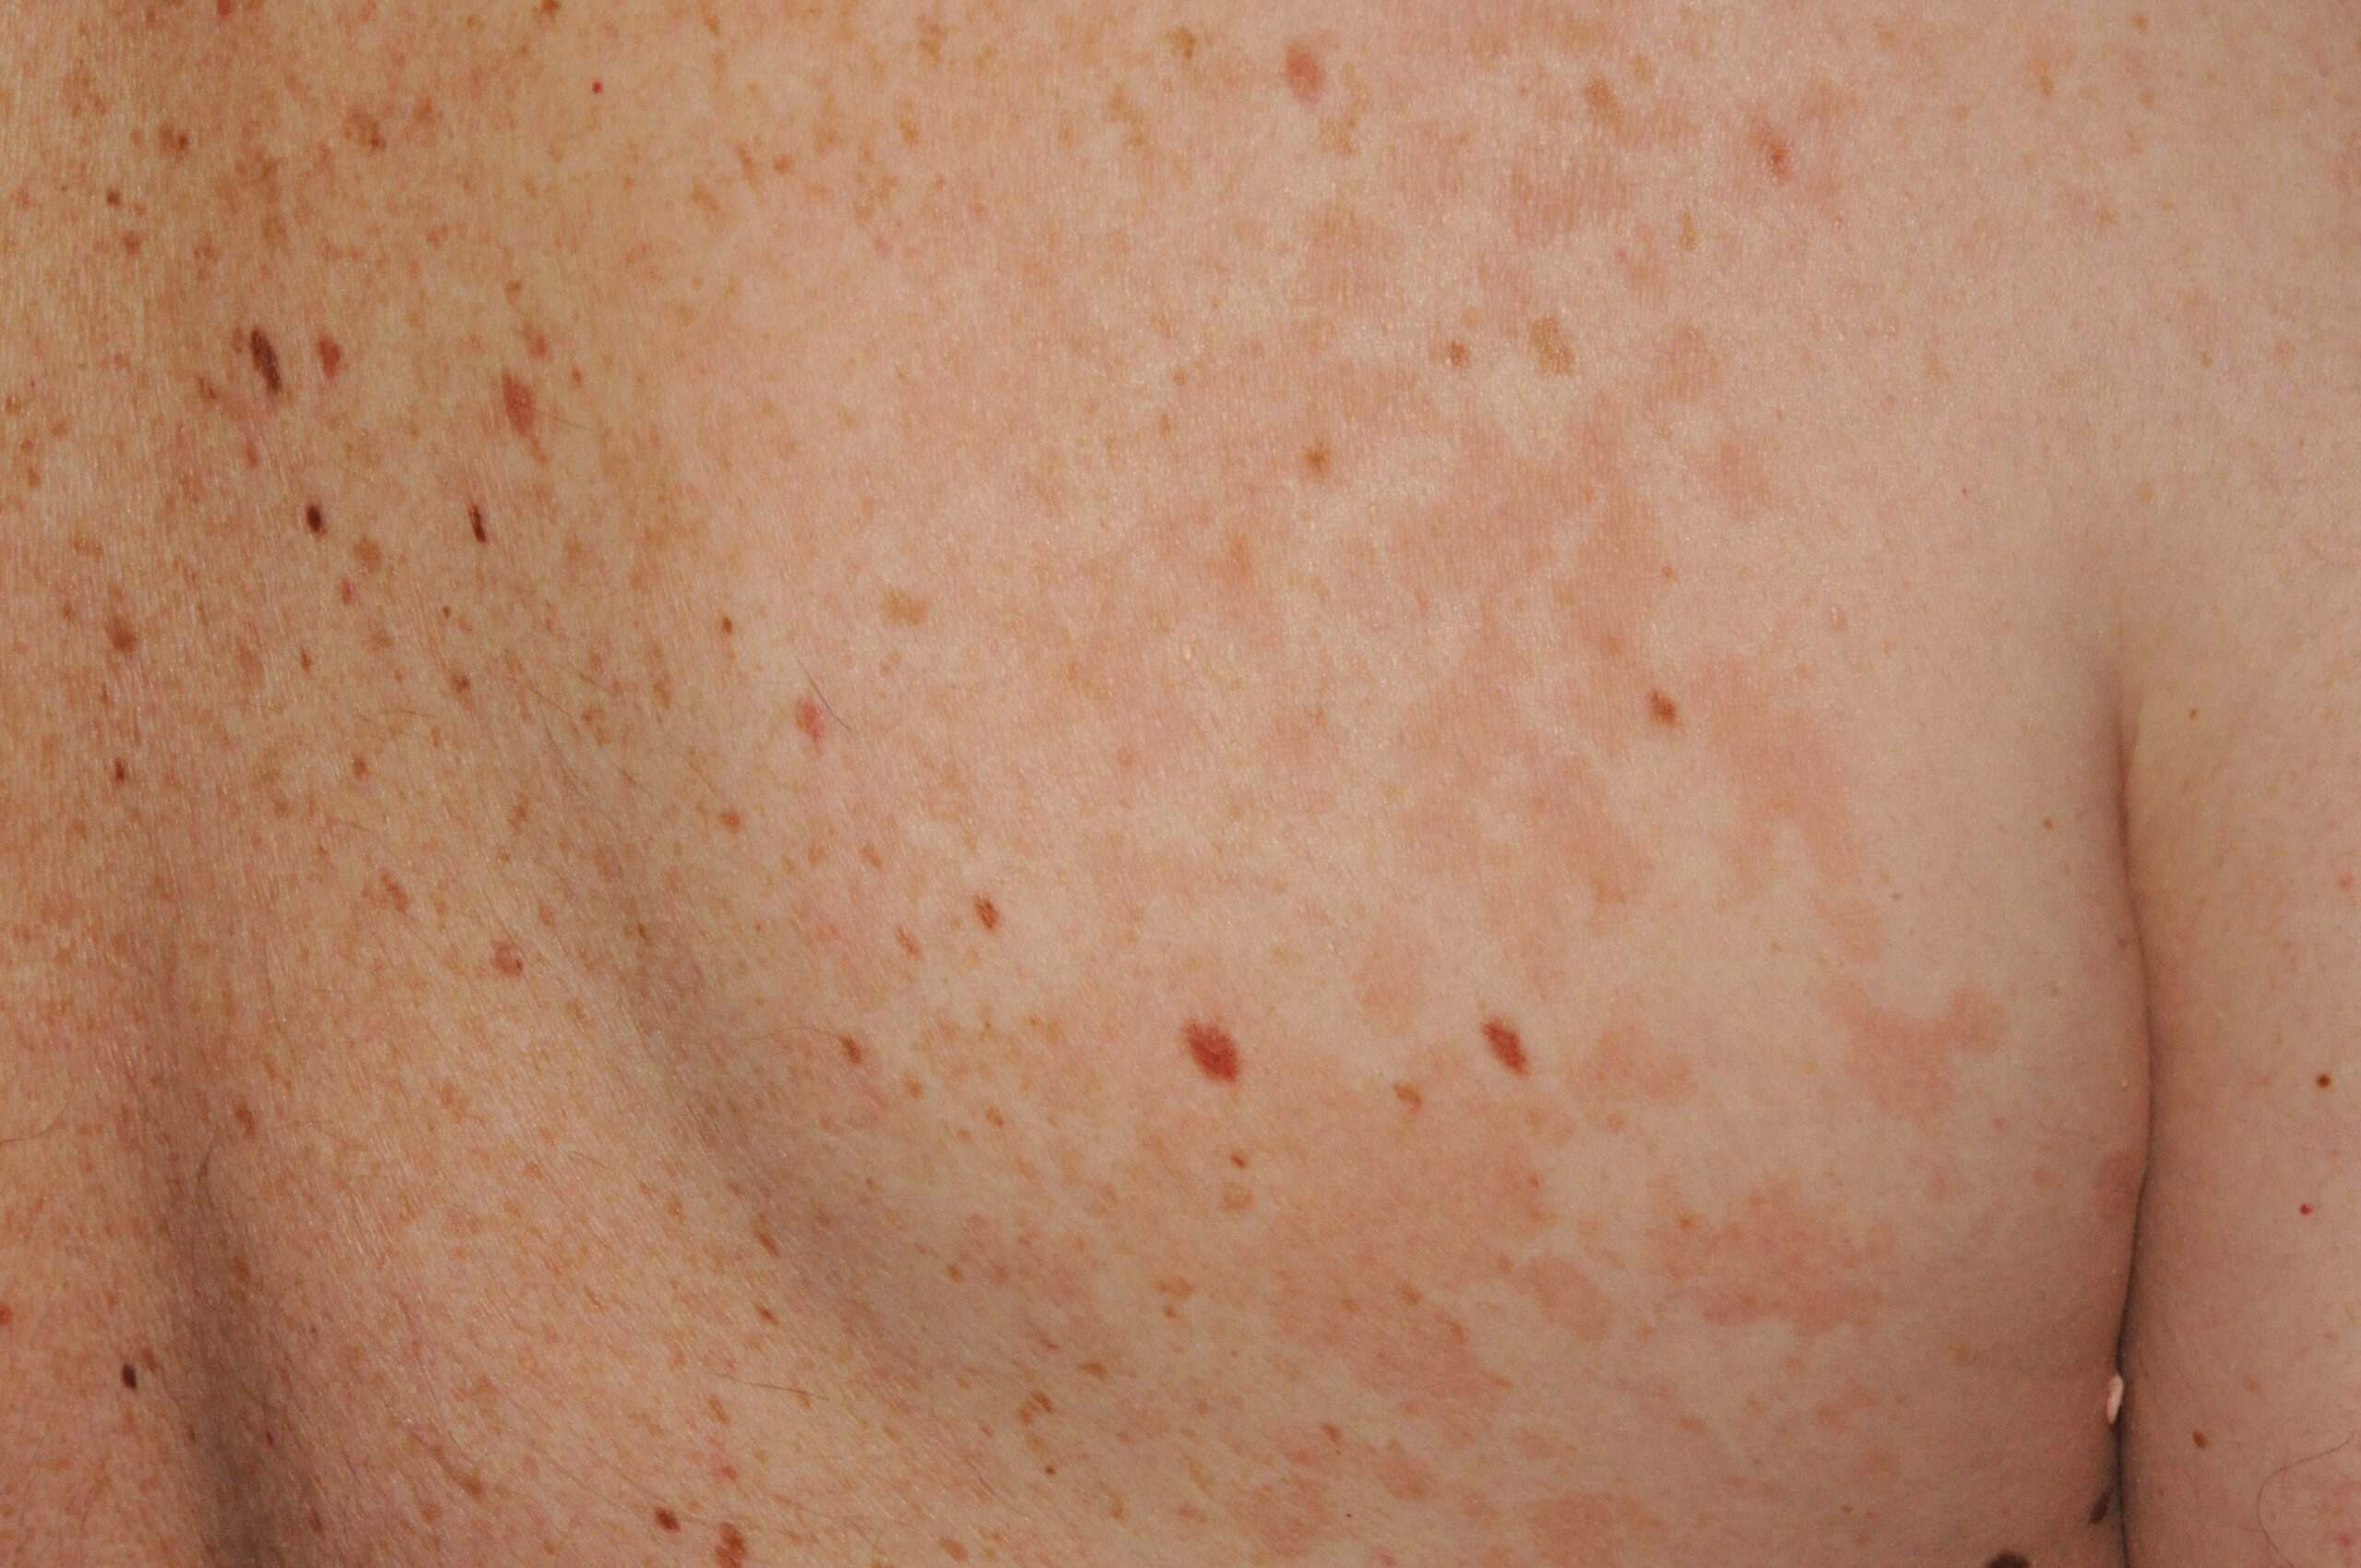
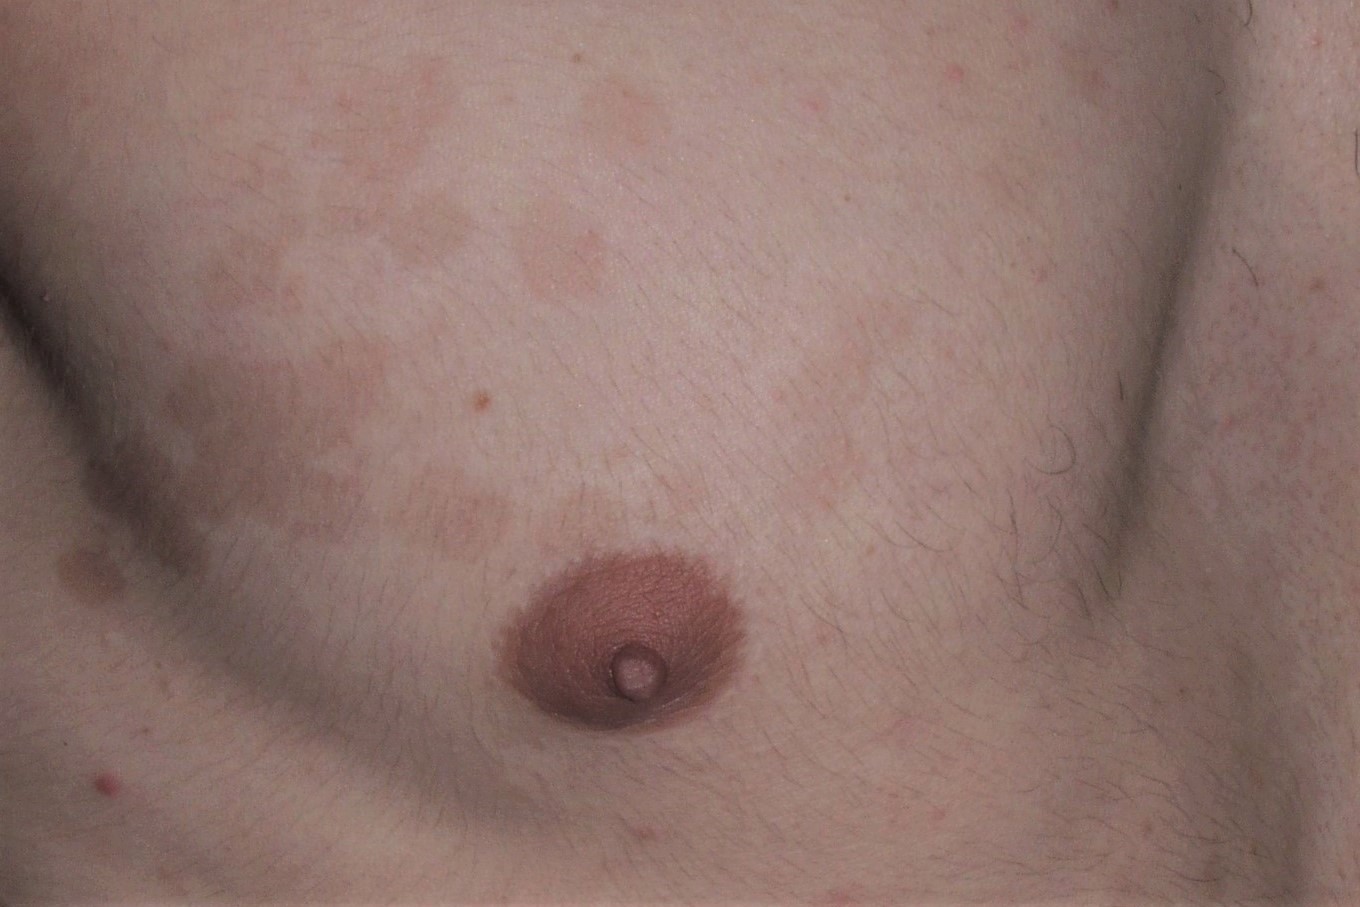
2.4. Virulencia de los dermatofitos y patogenia de las tiñas
Las infecciones por dermatofitos abarcan un amplio espectro clínico, desde individuos portadores asintomáticos hasta infecciones abscesiformes agudas, muy purulentas, pasando por lesiones crónicas sin apenas signos inflamatorios. Incluso hay formas invasivas potencialmente mortales. La patogenicidad y virulencia de los dermatofitos viene determinada por su capacidad de producir una gran variedad de enzimas proteolíticas e hidrolíticas (proteasas) capaces de biodegradar la queratina y utilizar sus metabolitos para la obtención de energía.
Tras colonizar las estructuras queratinizadas del anfitrión (piel, uñas, cabello) los dermatofitos pueden causar una tiña, un proceso que depende de cambios bioquímicos y moleculares. En su patogenia se suceden varias etapas: adhesión fúngica, germinación, invasión y penetración. En primer lugar, se produce la fijación del hongo a la pared de queratina de los corneocitos mediante la expresión de adhesinas específicas de carbohidratos que se ubican en la superficie de los conidios. Sus proyecciones en forma de fibrillas se fijan a la capa córnea de la piel del hospedador en las 3-4 horas siguientes al contacto, germinan dentro de las 24 primeras horas y se extienden por la superficie de los corneocitos formando hifas que crecen en diferentes direcciones. P.ej., los hongos del género Trichophyton se adhieren a la manosa y galactosa de los queratinocitos mediante adherencias específicas de carbohidratos (CSA, por sus siglas en inglés) expresadas en la superficie de los microconidios. Glicoproteínas como la dipeptidil-peptidasa IV que contienen manano permiten la adherencia de los dermatofitos a la superficie de la célula anfitriona de manera dependiente del pH. Las conidias permanecen inactivas hasta que se alcanzan las condiciones óptimas para la germinación.
La germinación de los conidios finalmente permite la formación y penetración de hifas. Los dermatofitos son patógenos primarios que precisan fragmentar la queratina para obtener nutrientes para su metabolismo. Los tejidos epidérmicos ricos en queratina contienen, además, una red de proteínas reticuladas como involucrina, loricrina y pequeñas proteínas ricas en prolina que forman la envoltura celular cornificada. Todas ellas son ricas en residuos cisteína que forman puentes disulfuro en un complejo proteico insoluble. Para poder degradar estas proteínas estructurales de la queratina, es necesario primero reducir los puentes disulfuro de cistina para que las proteasas secretoras adicionales puedan degradar las estructuras de queratina compactas. M. canis, posee una proteasa secretada de la familia de la subtilisina Sub3, metaloproteasas y dipeptidil-peptidasas que interviene en el proceso de adherencia y en la fase temprana de la invasión. Durante la penetración en el tejido del huésped, los hongos deben buscar y recolectar nutrientes para asegurar el establecimiento de la infección, secretando enzimas como lipasas, fosfatasas y proteasas queratinolíticas. La degradación proteolítica de las estructuras queratinizadas da como resultado oligopéptidos cortos y aminoácidos libres que son absorbidos por las células fúngicas para almacenar energía. Ahora bien, la degradación de la queratina dura, como la de las uñas o el cabello, solo es posible después de la relajación de su estructura, que está mediada por la acción del sulfito. La etapa inicial de la biodegradación de la queratina dura consiste en la sulfitolisis, la hidrólisis de los extensos puentes disulfuro presentes en la queratina. La sulfitolisis facilita la biodegradación extracelular de la queratina por medio de las endo y exoproteasas de los dermatofitos. La sulfitolisis libera los puentes disulfuros de cisteína de la queratina compacta del estrato córneo para producir cadenas solubles polipeptídicas que pueden ser cortadas por endoproteasas. Las endoproteasas (subtilisinas, deuterolisinas y fungalisinas) liberan péptidos largos que son sustrato para exoproteasas (amino- o carboxipeptidasas no específicas y prolil peptidasas) y los transforma en aminoácidos y péptidos cortos que pueden ser asimilados efectivamente por las hifas. Por otro lado, muchas de las proteasas (peptidasas, óxido-reductasas y beta glucosidasas) son antígenos para la respuesta inmune humoral ya que han sido reconocidas por anticuerpos séricos de pacientes (Mercer DK, 2024).