Currículum
Tema 14. Alopecias y enfermedades comunes de las uñas
1. ALOPECIAS
0/2

2. ALOPECIAS NO CICATRICIALES DIFUSAS
0/2
3. ALOPECIAS NO CICATRICIALES LOCALIZADAS
0/2
4. ALOPECIAS CICATRICIALES
0/6
5. LA UNIDAD UNGUEAL
0/1
6. TRASTORNOS COMUNES DE LAS UÑAS
0/7
7. ALTERACIONES UNGUEALES EN ENFERMEDADES DERMATOLÓGICAS
0/1
8. ENFERMEDADES DE LAS UÑAS
0/1
9. ALTERACIONES DE LAS UÑAS POR “TICS” (TOCS DE LAS UÑAS)
0/1
10. BIBLIGRAFÍA
0/1
Imágenes tema

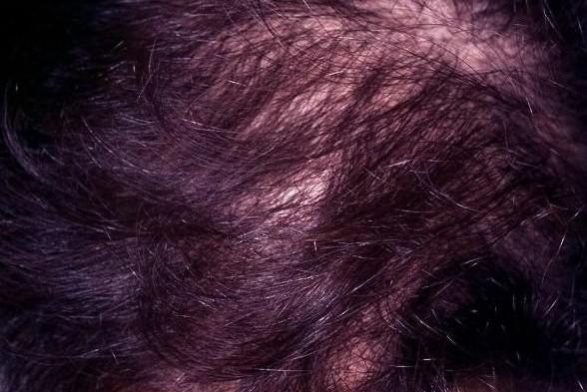
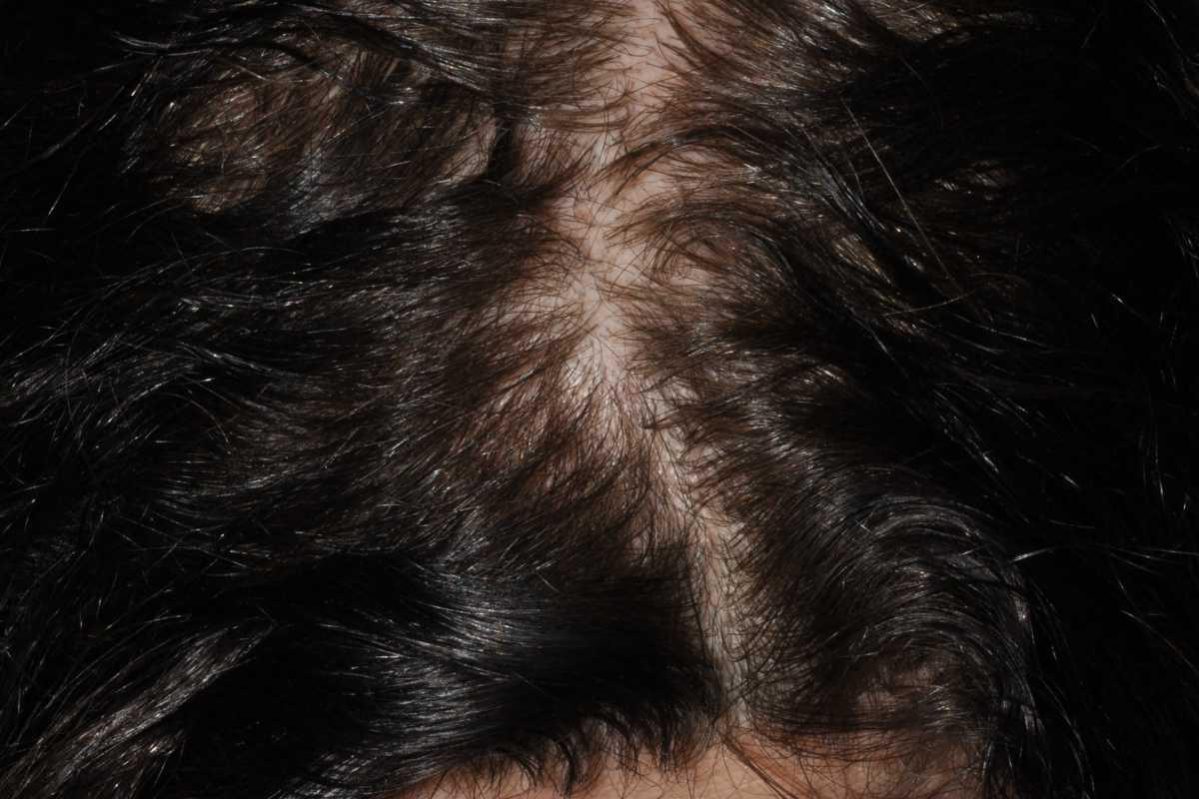
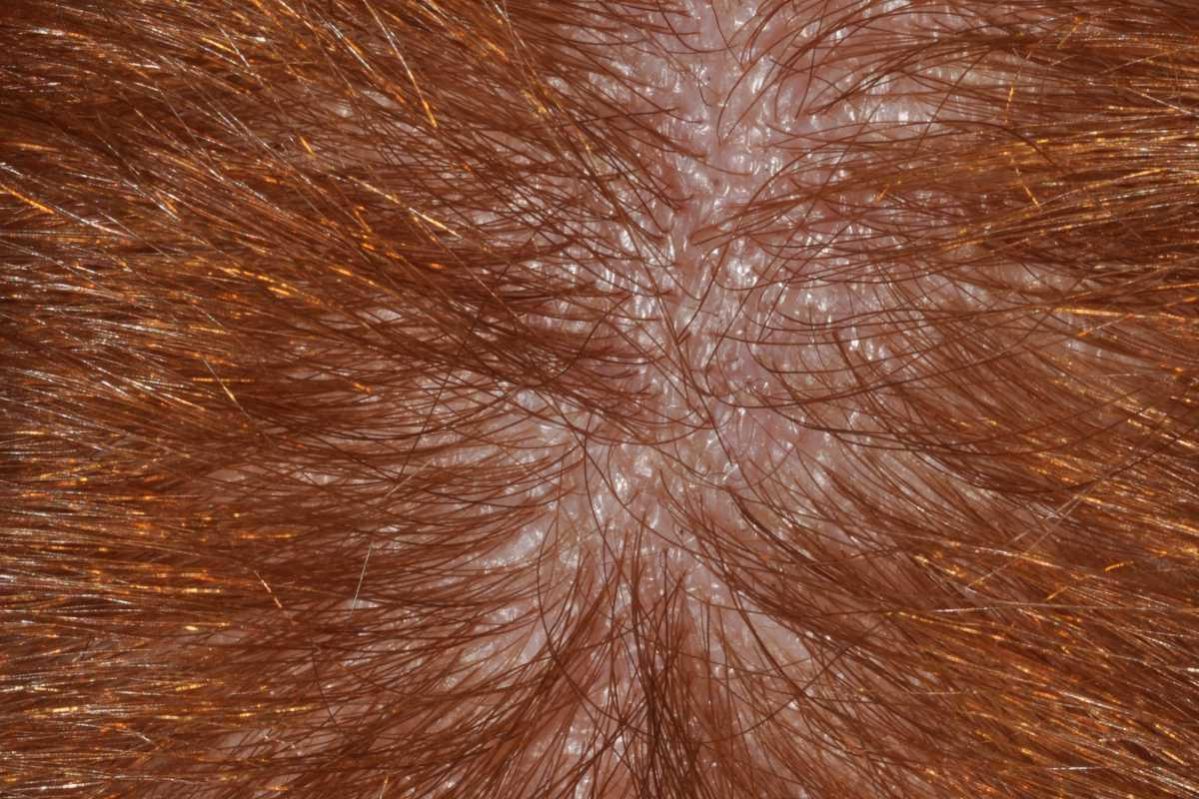
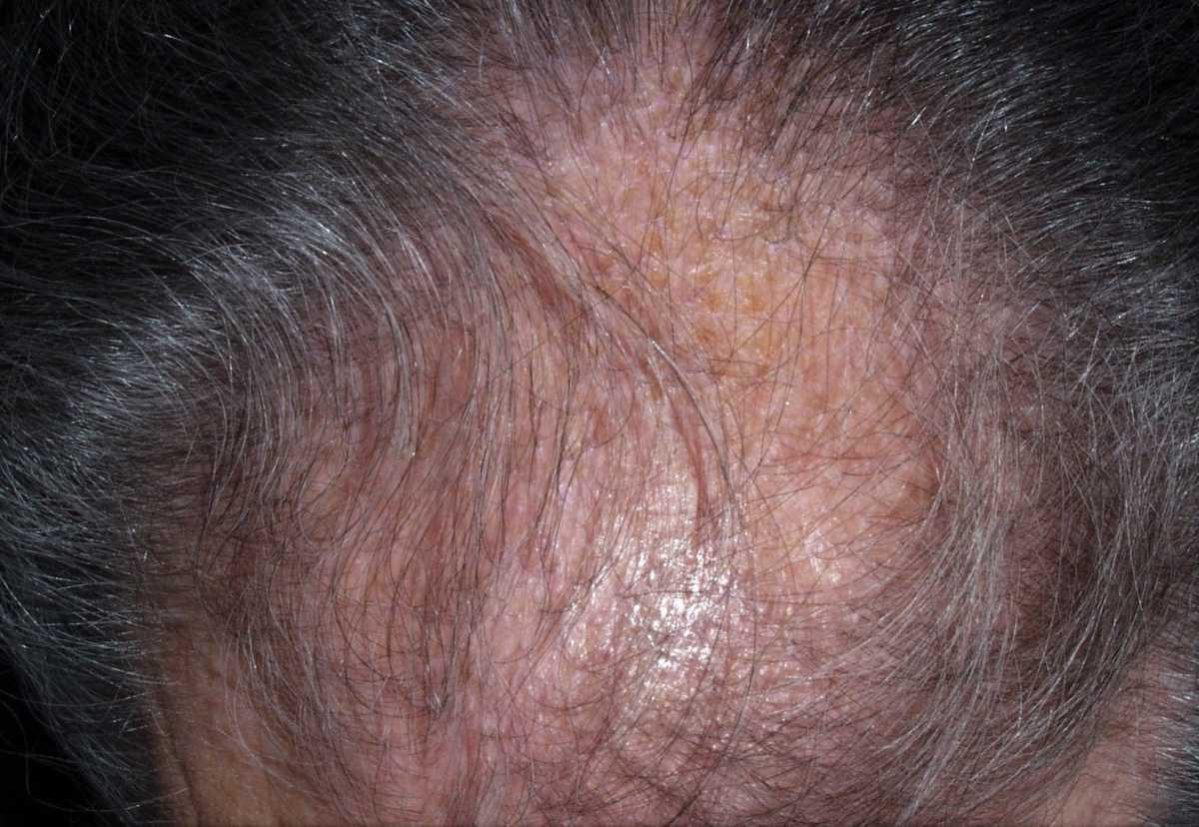
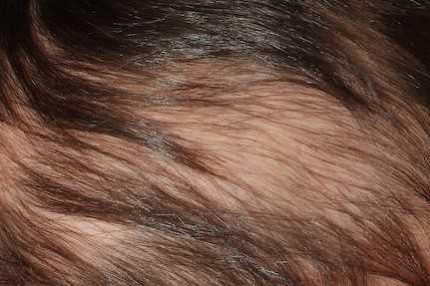
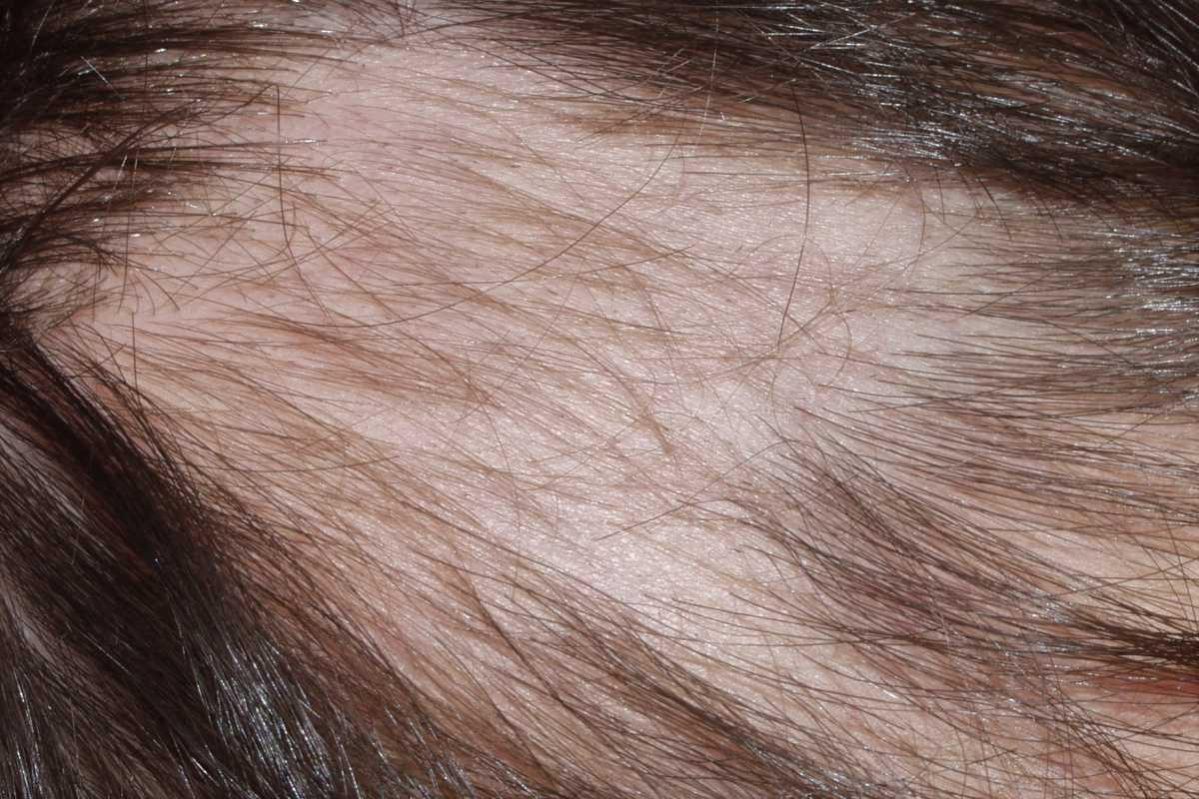
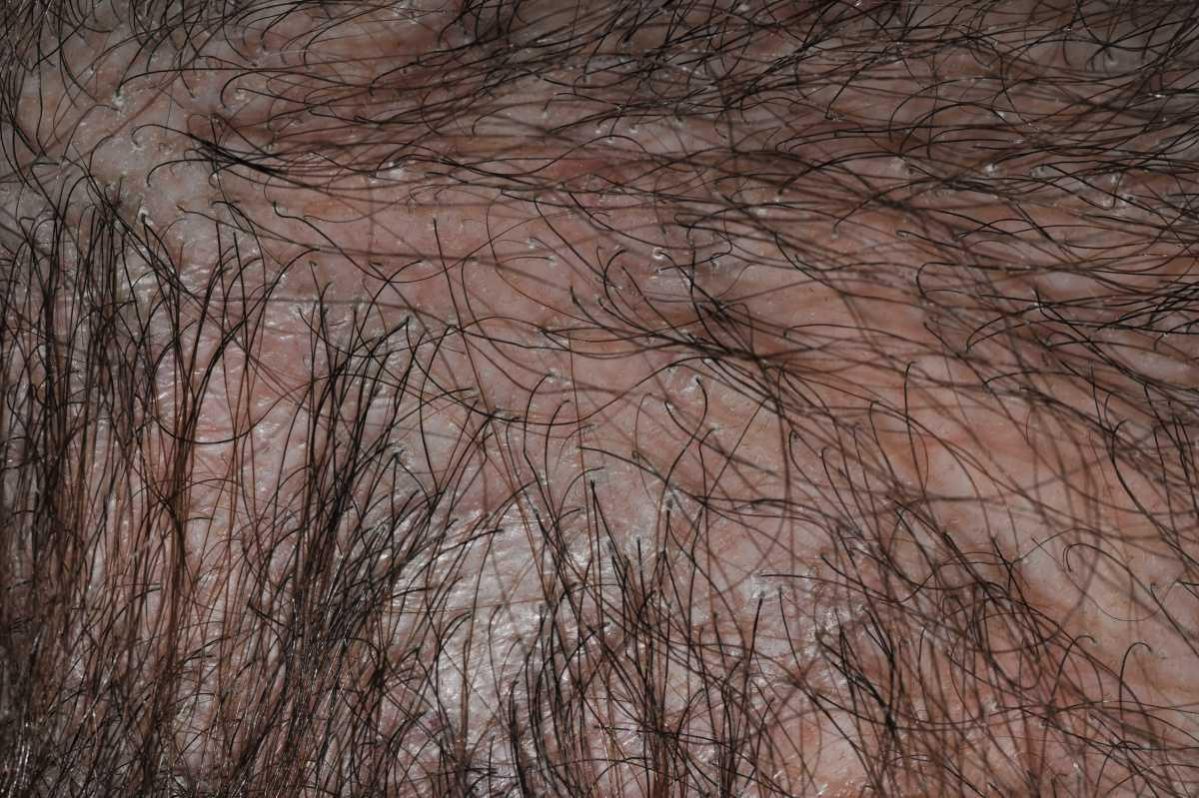
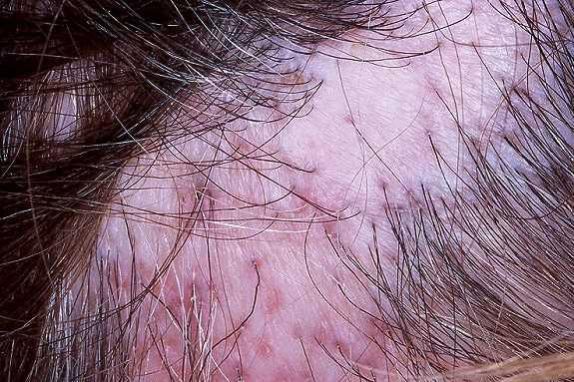
1.1. Introducción. El pelo, el folículo piloso y la unidad pilosebácea
1.1.1. Embriogénesis
En la embriogénesis del folículo piloso intervienen interacciones y comunicaciones complejas entre la epidermis y la dermis embrionarias. Estas interacciones comienzan alrededor del día 14 con la formación de un engrosamiento epidérmico denominado placoda. Las células de la placoda envían señales que conducen a la formación de un condensado dérmico que dará lugar a la papila dérmica. Los folículos pilosos se desarrollan entre las semanas 8 y 19 de la gestación. En su interacción, el condensado dérmico envía señales que estimulan la proliferación de las células epiteliales de la placoda que se extienden hacia abajo para formar el germen piloso. Más adelante, el germen piloso envuelve el condensado dérmico, que pasa a denominarse papila dérmica, formándose así el bulbo piloso (Grubbs H, 2023). La angiogénesis del folículo piloso, fundamental para su desarrollo, comienza alrededor de la décima semana de gestación bajo el estímulo de VEGF (vascular endothelial growth factor). Finalmente, se desarrollan las diversas vainas (vaina radicular externa e interna), la cutícula del tallo, la corteza y la médula para formar el folículo piloso maduro, al que se añaden la glándula sebácea y la glándula apocrina, ésta especialmente en el cuero cabelludo y los grandes pliegues (Murphrey MB, 2023).
En los seres humanos el pelo tiene unas determinadas características: cabello más denso en el cuero cabelludo, las cejas, los grandes pliegues y el pubis en ambos sexos, y cabello más denso y grueso en la barba y el tronco, por lo general, en el varón. Una vez iniciado el desarrollo, observamos que los folículos pilosos humanos crecen y maduran al mismo ritmo, independientemente de su ubicación anatómica, a pesar de sus diferentes densidades según la zona del cuerpo. Estos hallazgos demuestran que las diferencias regionales en las características del pelo humano se deben principalmente a procesos que actúan tras las etapas iniciales de la morfogénesis del folículo piloso, mientras que las diferencias entre las diversas áreas anatómicas son debidas a eventos genéticos y celulares que tienen lugar después de dicha morfogénesis. De todos modos, en todos los FP se detectan marcadores moleculares como EDA, EDAR, SOX2 y los componentes de la vía WNT (Sudderick ZR, 2026).
1.1.2. Tipos de pelo
Se describen tres tipos de pelo: 1) el lanugo o vello fetal es un pelo largo y fino, no pigmentado, que cubre al feto y cae alrededor de un mes antes del nacimiento; 2) el pelo velloso o vello es fino, corto y no pigmentado, y su porción más profunda se sitúa en la dermis papilar; 3 el pelo terminal es grueso, largo y pigmentado, y su raíz alcanza la dermis reticular o la hipodermis. El lanugo se desprende generalmente entre las semanas 36 y 40 de gestación y es sustituido por el vello fino, que cubre la mayor parte del cuerpo del recién nacido. El pelo de la barba aparece al llegar a la pubertad, momento en que las hormonas androgénicas transforman el vello fino de la zona facial en pelo terminal. Tras el nacimiento no se forman nuevos folículos pilosos, aunque sí puede crecer pelo nuevo a partir de los folículos ya existentes. También se puede modificar el tamaño de los folículo después del nacimiento (Grubbs H, 2023).
1.1.3. Estructura del folículo piloso
El folículo piloso (FP) completamente desarrollado consta de tres porciones: el infundíbulo que se extiende desde el orificio folicular externo hasta la desembocadura del conducto sebáceo; el istmo que va desde dicha desembocadura hasta la inserción del músculo erector; y el segmento inferior que abarca desde el istmo hasta la raíz del pelo y se dilata formando el bulbo que rodea, a modo de copa, una zona muy vascularizada de la dermis denominada papila dérmica, de la que dependen el aporte nutricional y las señales que regulan el crecimiento del pelo (Prost-Squarcioni C, 2006). Se denomina tallo piloso a la fibra que emerge del orificio folicular; consta de un núcleo interno, la médula, rodeado por la corteza, que constituye la mayor parte del pelo. Hacia el exterior, una capa única de células forma la cutícula del pelo, una estructura envuelta por tres capas que constituyen la vaina radicular interna (capas de Huxley y Henle). La vaina interna da forma al tallo piloso a medida que este crece hacia arriba desde la matriz. La vaina interna se queratiniza desde el exterior y finalmente se desintegra a mitad del folículo, aproximadamente al nivel del istmo. La vaina radicular externa envuelve la totalidad del tallo piloso y experimenta queratinización triquilemal a la altura del istmo. El istmo es la zona situada entre la desembocadura del conducto sebáceo y la protuberancia o bulge. El bulge es una región específica dentro de la vaina radicular externa que contiene las células madre foliculares (CK19+, CK15+ y CD200+), fundamentales para la regeneración del folículo piloso, mientras que en el bulbo están las células de la matriz folicular que rodean la papila dérmica. La papila dérmica es una región especializada de la dermis papilar que contiene células mesenquimales (fibroblastos) que interactúan con los queratinocitos de la matriz (células con la tasa mitótica más alta del organismo) y múltiples capilares. La elevada proliferación de los queratinocitos matriciales origina el tallo piloso. Estos queratinocitos se entremezclan con los melanocitos que son los que dan color al pelo. La papila dérmica desempeña un papel crucial en la regulación del crecimiento y desarrollo del folículo piloso, tanto durante la embriogénesis como en la vida posnatal. Envía señales a las células epiteliales adyacentes, las células de la matriz, para que proliferen y se diferencien. Durante la maduración, las células de la papila dérmica migran hacia arriba, contribuyendo a la formación de la vaina radicular interna y de las capas del tallo piloso (Martel JL, 2024).
1.1.4. Fases de crecimiento del pelo
Los folículos pilosos (FP) experimentan un proceso cíclico de desarrollo que comprende 3 fases: la fase de crecimiento o anágena, la fase de involución y apoptosis del segmento inferior o catágena, la fase de reposo o telógena y la fase de caída o fase exógena, que se considera una subfase de la anterior. Tras esta última se inicia un nuevo ciclo sobre la misma papila, lo que es esencial para la renovación continua del pelo a lo largo de la vida. La fase anágena, de proliferación, ocurre cuando el FP genera un nuevo tallo. La duración de esta fase puede variar según las regiones del cuerpo: de 2 a 6 años para el pelo del cuero cabelludo y solo unos meses en el caso de las cejas y las pestañas. Es el único período en el que está presente el segmento inferior del folículo piloso. Al inicio de la anágena, las células mesenquimales de la papila dérmica envían señales a las células madre epiteliales multipotentes situadas en la protuberancia o bulge. Una vez estimuladas, el segmento inferior del FP crece hacia abajo, formando un bulbo alrededor de la papila dérmica. Simultáneamente, la papila dérmica envía señales a las células de la matriz en el bulbo para que proliferen, se diferencien y crezcan hacia arriba, generando así el nuevo FP y el cabello. La fase catágena o de regresión dura solo unas pocas semanas y es la etapa más breve del crecimiento capilar. Este período se caracteriza por la existencia de un cabello en forma de maza (club hair), un cabello con un nódulo duro y blanquecino en su extremo inferior. En la fase de telógena (de reposo), el cabello está completamente formado, pero no crece activamente. Los cabellos en forma de maza (que están esencialmente muertos) permanecen en el cuero cabelludo durante unos 100 días. Cesa la división celular en la matriz, el segmento inferior experimenta una regresión y finalmente desaparece por apoptosis, con lo que la papila dérmica asciende de nuevo para entrar en contacto con la protuberancia folicular. La fase de exógena o de desprendimiento se considera una subfase de la telógena. Durante la exógena, el cabello antiguo se desprende y deja paso al crecimiento de uno nuevo (Lin X, 2022).
Todos los FP comienzan en la fase anágena al nacer. En un momento dado, en un adulto humano, entre el 85% y el 90% de los FP se encuentran en fase anágena. La longitud final que alcanza un pelo depende de la duración de esta fase proliferativa, lo que explica el escaso crecimiento del pelo del cuerpo, las cejas y las pestañas, con una fase de actividad mitótica más corta y fases catágen y telógen relativamente más largas. La fase anágena es un periodo proliferativo caracterizado por la producción del tallo piloso, mientras que las fases catágena y telógena describen, respectivamente, la regresión y el reposo del folículo, lo que finalmente conduce a la caída del cabello (Murphrey MB, 2023).
El folículo piloso se considera un «mini-órgano» que está compuesto por el folículo piloso, la glándula sebácea, la glándula apocrina y el músculo erector del pelo. En la vida embrionaria se forma a partir de células madre ectodérmicas (placoda, que también da lugar a los dientes y a las glándulas mamarias) y como resultado de interacciones con tejidos mesodérmicos (condensado dérmico). Dichas interacciones se mantienen a lo largo de la vida, cuando los FP están completamente formados, entre las células madre de la protuberancia, las células matriciales y las células mesenquimales de la papila dérmica. Gracias a ello, los FP sufren una regeneración cíclica a partir del reservorio de las células madre foliculares situadas en el promontorio, unas células quiescentes, de ciclo lento y multipotentes, que expresan marcadores como CD34, CK15, CK19 y LGR5 (Grubbs H, 2023). Tras cada telógen, una subpoblación de células del bulge y del germen piloso secundario es activada para reconstruir el segmento inferior y dar lugar a una nueva anágen. Estas mismas células participan, además, en la reepitelización de las heridas cutáneas, lo que subraya su importancia regenerativa. Están dotadas de un potencial de diferenciación multilinaje y una capacidad proliferativa superior. Su activación está gobernada por un diálogo epitelio-mesénquima entre el bulge y la papila dérmica. La papila secreta señales activadoras de la vía Wnt/β-catenina; moduladas por las Respondinas que inducen la transición telógen-anágen, mientras que las proteínas morfogénicas óseas (BMP) mantienen la quiescencia. El equilibrio entre ambas, junto con las vías Sonic hedgehog , los factores de crecimiento fibroblástico y la angiogénesis dependiente de VEGF, determina el inicio y la duración del crecimiento. La «hipótesis de activación del bulge» postula que la regresión del segmento inferior durante la catágen acerca la papila al nicho de células madre, permitiendo que la señal inductora alcance dichas células (Wang X, 2022). El conocimiento de estas vías sustenta las terapias emergentes (plasma rico en plaquetas, células madre, factores de crecimiento) dirigidas a reactivar el ciclo folicular en las alopecias.
1.1.5. Irrigación e inervación del folículo piloso
A medida que se desarrolla el folículo piloso, este queda rodeado por vasos sanguíneos procedentes del plexo vascular dérmico profundo. Estos vasos nutren el folículo piloso y facilitan el aporte de nutrientes, la eliminación de desechos y el crecimiento del pelo. Los folículos pilosos en fase anágena poseen propiedades angiogénicas gracias a la secreción de factores de crecimiento, como el factor de crecimiento endotelial vascular (VEGF). Los nuevos capilares modulan el aporte sanguíneo a los folículos pilosos y garantizando un flujo sanguíneo adecuado a lo largo de todo el ciclo capilar. Este aporte sanguíneo es esencial para el crecimiento, la maduración y el mantenimiento adecuados del folículo piloso, garantizando así la satisfacción de las demandas metabólicas del crecimiento activo del pelo. La mayor concentración de vasos capilares se localiza en la papila dérmica, desde donde se suministran los nutrientes necesarios para el desarrollo del FP (Li KN, 2019).
Dos redes nerviosas inervan el pelo y los folículos pilosos; ambas contienen fibras nerviosas sensoriales y fibras nerviosas autónomas. Una de las redes nerviosas está compuesta por fibras sensoriales tipo C y fibras simpáticas, ambas rodean el cuello del folículo piloso. La otra está formada por fibras longitudinales A-delta y fibras circulares tipo C, y que rodean la sección media del folículo piloso, entre el istmo y la glándula sebácea. Nervios adyacentes también inervan la porción proximal de los músculos erectores del pelo. Estas fibras intervienen en las respuestas mecanosensoriales y dolorosas del folículo piloso (Shwartz Y, 2020).
1.1.6. El músculo erector del pelo
El músculo principal asociado al pelo es el músculo erector del pelo. Este músculo se desarrolla independientemente del folículo piloso, cerca de la glándula sebácea; se conecta al folículo a la altura de la protuberancia y se fija al tejido conectivo de la membrana basal. La contracción del músculo erector del pelo provoca que el vello se erice, una reacción conocida como piloerección o «piel de gallina». La función de estos músculos es mediar en la termorregulación: se contraen para levantar el pelo o se relajan para dejarlo caer. Esta acción es principalmente una respuesta al frío o a estímulos emocionales, y ayuda a retener el calor al atrapar una capa de aire bajo el vello erguido (Murphrey MB, 2023). Se ha estimado mediante reconstrucción digital en 3D que la profundidad media de este músculo de de 943,6 μm respecto a la superficie cutánea; el ángulo medio con respecto a la superficie de la piel, de 28,8 grados; y la longitud media, de 1657,9 μm (Ezure T, 2025). La contracción de estos músculos también facilita la secreción de sebo de las glándulas sebáceas, lo que ayuda a lubricar y proteger tanto el pelo como la piel.
El músculo erector del pelo puede ser origen de los leiomiomas cutáneos, tumores benignos y poco frecuentes de músculo liso, que se subclasifican según el origen del tejido muscular liso presente en el tumor. El tipo más frecuente, el angioleiomioma, se origina en la túnica media de los vasos sanguíneos. Los otros dos subtipos, los piloleiomiomas y los leiomiomas genitales, provienen, respectivamente, del músculo erector del pelo del folículo piloso y del músculo liso que se encuentra en el escroto, los labios genitales o el pezón. Los pacientes con múltiples leiomiomas cutáneos (piloleiomiomas múltiples) pueden albergar una mutación genética que aumenta su susceptibilidad a desarrollar carcinoma de células renales. Además, tanto los piloleiomiomas como los leiomiomas genitales pueden ser dolorosos (Bernett CN, 2023).
1.1.7. Funciones del pelo
En los animales con un pelaje denso, el pelo mantiene la temperatura corporal reteniendo el calor o protegiendo del frío. El pelo proporciona una capa aislante entre la piel y el pelaje. También puede proporcionar camuflaje y servir como atractivo sexual. El pelo, gracias a las terminaciones nerviosas que posee, es sensibles al tacto y a las vibraciones (puede proporcionar placer o dolor según el grado de estímulo). En el cuero cabelludo de los humanos, proporciona una barrera física que ayuda a proteger la piel frente a daños ambientales como la radiación ultravioleta (son excepcionales las queratosis actínicas en pacientes con pelo abundante y frecuentes en los que tienen calvicie desde la juventud) (Panteleyev AA, 2018). Existen algunos pelos especializados como los de las pestañas y las cejas (que nos protegen del sudor de la frente y evitan que penetre polvo en los ojos y que la radiación UV dañe la retina). El papel del pelo, por último, desempeña una función crucial en la identidad y la autoestima. Su pérdida, la alopecia, puede repercutir en la calidad de vida (Grubbs H, 2023).
Los folículos pilosos desempeñan un papel crucial en la cicatrización de heridas y la regeneración de la piel. Las células madre de la protuberancia del folículo piloso pueden migrar hacia la epidermis vecina para ayudar en la reparación de los tejidos (ver tema 1 “cicatrización”). Además, los folículos pilosos liberan diversas citocinas y factores de crecimiento que promueven la proliferación celular y la reparación tisular durante la cicatrización. Además, actúa como un órgano endocrino. Los folículos pilosebáceos responden a diversas hormonas, lo que influye en el crecimiento, la densidad y la distribución del cabello (p.ej., los andrógenos desempeñan un papel importante en el desarrollo de la calvicie de patrón masculino) (Ceruti JM, 2018). Los folículos pilosos secretan sebo, una sustancia oleosa producida por las glándulas sebáceas asociadas a ellos, que ayuda a lubricar e impermeabilizar el cabello y la piel y por su pH ácido actúa como componente del sistema inmune innato (Grymowicz M, 2020).
1.1.8. El privilegio inmune de las células madre del folículo piloso
El folículo piloso y, en particular, la región de la protuberancia y las células mesenquimales de la papila dérmica, constituye un nicho de privilegio inmune. Durante la anágen, regulan a la baja la expresión de moléculas del complejo mayor de histocompatibilidad (MHC) de clase I y II y crean un microambiente inmunosupresor mediado por TGF-β, α-MSH, CD200, macrófagos y mastocitos reguladores. También evitan la autoinmunidad y la inflamación crónica los linfocitos Treg que protegen ambos nichos (Cohen JN, 2024). En la alopecia areata se produce una señalización anómala de IL-2 en las interfaces entre el estroma y el FP que permite este tipo de alopecia. En esta alopecia se desencadena un ataque autoinmune sobre el bulbo anágeno, recuperable porque las células madre se preservan. En concreto se produce el daño citotóxico sobre los melanocitos residentes del bulbo en fase anágena, pero preservando las células madre, lo que permite la regeneración capilar tras la inmunosupresión (Kiselev A, 2024). En las alopecias cicatriciales como el liquen plano pilar (LPP) y la alopecia frontal fibrosante (AFF) se produce una dermatitis de interfase crónica que destruye el nicho de células madre, conduciendo a una fibrosis permanente. Ambas comparten características en cuanto a la inflamación dirigida a la protuberancia folicular o bulge y la histopatología, pero difieren en su distribución clínica y en los factores de riesgo. El lupus eritematoso discoide (LED) del cuero cabelludo refleja un daño en la porción superior del folículo mediado por el complemento y complejos inmunitarios, mientras que la alopecia cicatricial centrífuga central (ACCC) representa un proceso dominado por fibroblastos, asociado al estrés crónico y mantenido por la remodelación estromal (Shafiei-Jahani P, 2026).
1.1.9. La glándula sebácea y la unidad pilosebácea
La unidad pilosebácea comprende el folículo piloso (FP) (y las vainas que lo envuelven), la glándula sebácea y el músculo erector del pelo y, en determinadas áreas (zonas intertriginosas como axilas, zona genital y perianal), la glándula apocrina en lo que denomina unidad pilo-sebácea-apocrina (Murphrey MB, 2023; Martel JL, 2024).
La glándula sebácea (GS) constituye un órgano activo y dinámico que contribuye significativamente al mantenimiento de la homeostasis cutánea. Su desarrollo embrionario tiene lugar entre las semanas 13 y 16 de gestación, a partir de la protuberancia del folículo piloso en formación. Diversas vías de señalización y factores (entre ellos las vías Sonic Hedgehog y Wnt, y las proteínas de heparán sulfato y C-myc) intervienen en la regulación y la proliferación de los sebocitos (Ji S, 2021; Park S, 2022).
Su función principal en la producción de sebo, una mezcla de lípidos compuesta sobre todo por triglicéridos, ésteres de cera, escualeno y ácidos grasos libres, cuya función principal es lubricar e impermeabilizar la superficie cutánea. También lubrican el tallo del pelo a su paso por el canal que forma el infundíbulo. Su producción depende en gran medida de los andrógenos, de modo que varía con la edad, el sexo y la zona del cuerpo. Los lípidos sebáceos, que constituyen el 90% de los lípidos de la superficie cutánea en adolescentes y adultos, desempeñan un papel destacado en la función de barrera cutánea. También tienen una función endocrina y neuroendocrina local, forman parte de la respuesta inmunitaria innata perifolicular y regulan la colonización bacteriana de la piel. Las alteraciones estructurales y funcionales de las GS, que conducen a una desregulación de la producción o composición del sebo y de la respuesta inmunitaria, pueden contribuir a la patogenia de varias dermatosis inflamatorias (Mosca S, 2025). La inflamación interviene en las primeras fases de la patogenia en el acné.
Los sebocitos actúan como potentes reguladores inmunitarios, integrándose en las respuestas de inmunidad innata de la piel. Al expresar mediadores inflamatorios, los sebocitos también contribuyen a la polarización de los linfocitos T cutáneos hacia el fenotipo Th17. Además, los sebocitos expresan in vitro receptores de reconocimiento de patrones (PRR), que interactuarían con bacterias para iniciar la respuesta inflamatorias en la patogenia del acné. Por un mecanismo similar, los patrones moleculares repetitivos de bacterias y hongos residentes se unen los ligandos de los receptores activándolos y desencadenando una reacción inmune innata, inflamatoria, en numerosas enfermedades cutáneas congénitas y adquiridas, incluidas la dermatitis atópica y algunas enfermedades del cuero cabelludo como la dermatitis seborreica (Zouboulis CC, 2022).
Las glándulas sebáceas de secreción holocrina están asociadas a los folículos pilosos, especialmente en el cuero cabellludo y la cara, pero también en otras áreas seborreicas como la parte superior del pecho y de la espalda. Estas glándulas desembocan en los folículos pilosos, salvo en zonas como los labios, donde vierten su contenido directamente sobre la superficie mucosa debido a la ausencia de folículos pilosos. Al ser estimuladas por hormonas como los andrógenos, las glándulas sebáceas secretan un sebo rico en lípidos que protege el pelo y proporciona a la piel una barrera protectora hidrófoba (Paniagua Gonzalez LM, 2018; Wortsman X, 2019).